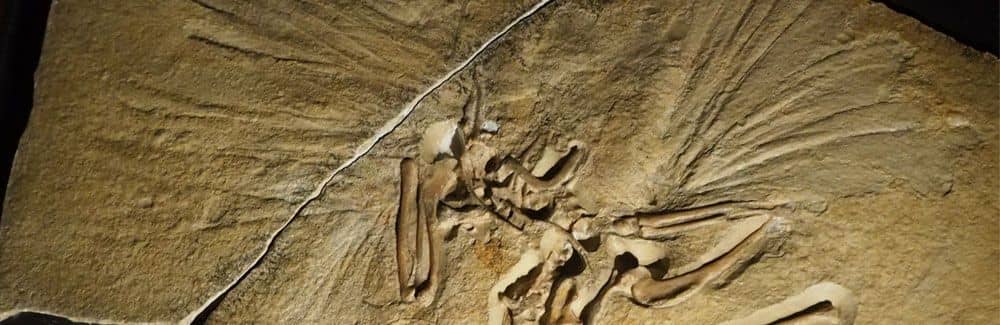
アーケオプテリクス | 始祖鳥とは
| 学名(属名) | Archaeopteryx |
| 名前の意味 |
古代の翼
archaio(古代の)[ギリシャ語]-pteryx(翼)[ギリシャ語] |
| 分類 | 竜盤目・獣脚亜目・原鳥類(鳥翼類)・アーケオプテリクス科 |
| 全長・体重 | 全長:約30〜50cm(カラスやハト程度) / 推定体重:数百g〜最大2kg未満 |
| 食性 | 肉食(昆虫、小動物など) |
| 生息時期 | ジュラ紀後期(キンメリッジアン末期〜チトニアン初期:約1億5200万〜1億4850万年前) |
| 下分類・種名 |
Archaeopteryx lithographica(模式種)
Archaeopteryx siemensii Archaeopteryx albersdoerferi |
| 論文記載年 | 1861 |
| 属名の記載論文 | von Meyer, H. (1861). Archaeopterix lithographica (Vogel-Feder) und Pterodactylus von Solnhofen. Neues Jahrbuch für Mineralogie, Geognosie, Geologie und Petrefakten-Kunde. |
進化論を実証した象徴
アーケオプテリクス(和名:始祖鳥)は、約1億5200万〜1億4850万年前のジュラ紀後期に生息していた、進化生物学の歴史において最も象徴的な古生物です。この名前の由来となった最初の化石は、1860年または1861年にドイツ・バイエルン州のゾルンホーフェン石灰岩から発見された「1枚の羽毛(単離羽毛標本)」であり、ドイツの古生物学者ヘルマン・フォン・マイヤーによってギリシャ語で「古代の翼」を意味する『Archaeopteryx』と命名されました。
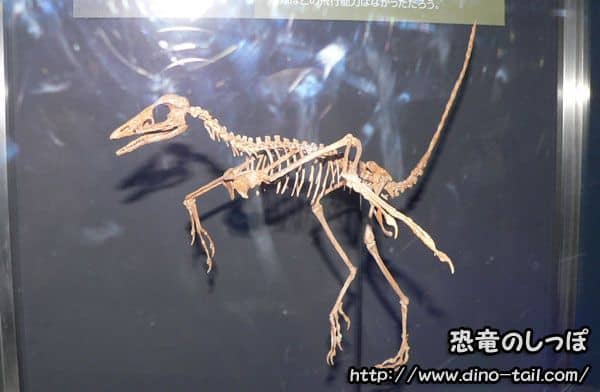
その直後の1861年には、羽毛の痕跡が明瞭に残る最初の骨格標本(ロンドン標本)が発見されました。これはチャールズ・ダーウィンが『種の起源』を出版したわずか2年後の出来事でした。顎に並ぶ鋭い歯、前肢(翼)の独立した3本の鉤爪、長い骨質の尾といった爬虫類(恐竜)的な特徴と、左右非対称の風切羽、鎖骨が癒合した叉骨(ウィッシュボーン)、鳥類型の脳函といった鳥類的な特徴を併せ持つこの化石は、進化の移行過程を示す決定的な証拠として科学界に衝撃を与えました。
1868年にはトマス・ヘンリー・ハクスリーが小型獣脚類コンプソグナトゥスとの類似性から「鳥類の恐竜起源説」を提唱します。この説は長らく主流から外れていましたが、1970年代にジョン・オストロムがデイノニクス(ドロマエオサウルス科)との詳細な比較解剖学的研究を行ったことで注目されることになります。さらに20世紀末から21世紀にかけて、中国遼寧省などから羽毛恐竜の化石が相次いで発見されたことで、かつて「すべての現生鳥類の直接的な単一の祖先」として孤立した地位を与えられていた始祖鳥は、現在では原鳥類(パラヴェス類)の多様な進化の中に位置する「最も基盤的な鳥類(鳥翼類:アヴィアラエ)」の1つとして理解されています。
単離羽毛標本の色と機能:マットな黒色
走査型電子顕微鏡などを用いて最初の羽毛化石に残る「メラノソーム(色素顆粒)」の微細構造を調べた結果、この羽は構造的強度を高める棒状のメラノソームに富み、先端に向かって濃くなる「マットな黒色」であったことが判明しています。黒色のメラニン色素はケラチン繊維の耐摩耗性と硬さを向上させるため、初期の羽ばたき飛行で生じる空気の力(空力的負荷)に耐えるための重要な適応として機能していました。
バタフライ式の羽ばたきと「三列風切羽」の発見
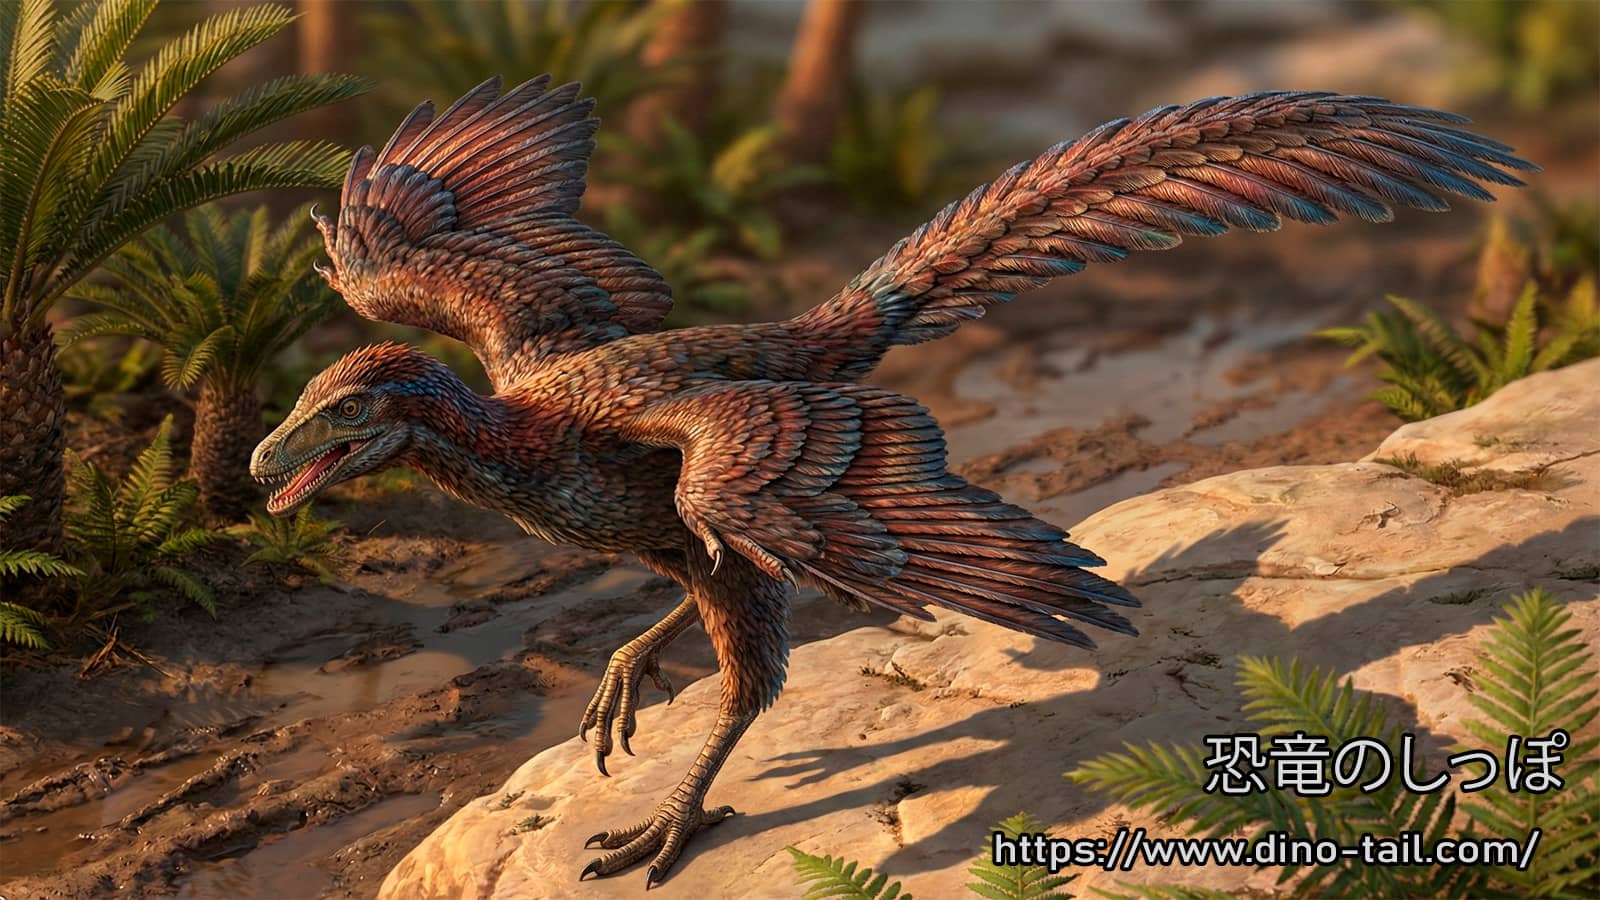
by Gemini.
始祖鳥が自力で羽ばたいて飛べたのか、それとも木から木へ滑空する程度だったのかという問題は、150年以上にわたる論争の的でした。かつて滑空説が唱えられていた理由は、現代の鳥が強大な胸の筋肉を付着させるための骨化した「竜骨突起(胸骨の出っ張り)」を欠いており(始祖鳥の胸骨は軟骨のままでした)、また翼を素早く背中側へ引き上げる滑車の役割を果たす肩の構造(三骨間孔)も未完成であったためです。
しかし2018年、欧州シンクロトロン放射光施設(ESRF)の高解像度X線検査によって翼の骨(上腕骨や尺骨)の内部断面を調べた研究により、この論争に決着がつきます。始祖鳥の翼の骨は壁が極めて薄く(尺骨の骨壁は約0.16〜0.18ミリメートル)、ねじれる力に対する高い強度を備えていました。この構造は滑空する鳥ではなく、捕食者から逃げる際や障害物を越えるために短距離を力強く羽ばたく現代のキジやミチバシリと完全に一致していたのです。始祖鳥は現代の鳥のように翼を上下に動かすのではなく、肩の制約を補うために、水泳の「バタフライ泳法」のように前背側から後腹側へと斜め方向に翼を回す独自のストロークで自力飛行(動力飛行)を行っていました。
さらに、アンキオルニスなどの飛べない羽毛恐竜も前肢に長い羽を持っていたのに、なぜ始祖鳥だけが飛べたのかという疑問に対し、2025年に報告された第14骨格標本「シカゴ標本」の研究が決定的な答えをもたらしました。シカゴ標本の上腕部分には「三列風切羽(さんれつかざきりば)」と呼ばれる内側の風切羽が明瞭に保存されていたのです。飛べない羽毛恐竜では翼の羽が肘(尺骨)で終わっており、上腕と胴体の間に大きな隙間が開いていたため、そこから空気が漏れて乱流が生じ、揚力が失われていました。その反面、始祖鳥は長い三列風切羽を進化させてこの隙間を埋め、翼の先から胴体まで途切れのない空気力学的な翼面を作り出すことに成功していたのです。
「4枚翼」滑空仮説の棄却と羽毛の「外適応」
かつてミクロラプトルなどの発見から、「鳥類の飛行は前肢と後肢の両方を翼として使う4枚翼の滑空段階を経て進化した」とする仮説が有力視された時期がありました。しかし2014年に報告された第11標本(アルトミュール標本)の研究により、この仮説は否定されています。始祖鳥の後肢に生えていた長さ25〜40ミリメートルの「羽毛のズボン」は羽の左右が対称であり、揚力を生むのには不向きでした。正羽(羽軸と羽弁を持つ現代型の羽)は本来、体温保持や抱卵、求愛などの視覚的ディスプレイのために進化したものであり、後肢の羽は着陸時の減速用(エアブレーキ)として二次的に利用されたに過ぎません。このように、別の目的で進化した特徴が後から飛行という新しい機能に転用される進化の仕組みを「外適応(がいてきおう)」と呼びます。
口の中の摂食革命・成長速度・翼の指の謎
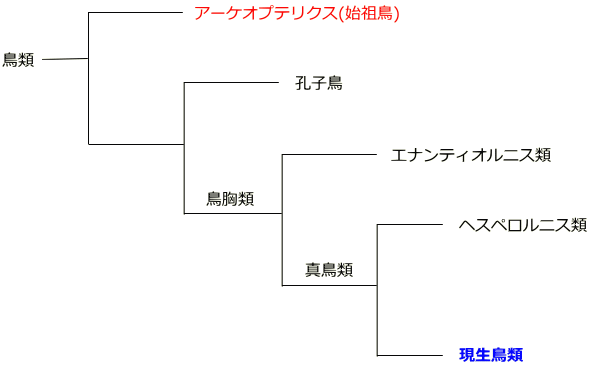
パラヴェス類(原鳥類)という恐竜のグループから進化しました。
始祖鳥の骨格は、恐竜の特徴と鳥類の特徴が部位ごとに異なる速度で進化した「モザイク進化」を体現しています。特に2025年から2026年にかけて発表されたシカゴ標本の超高解像度CTスキャンおよび紫外線(UV)照射による解析は、これまで謎に包まれていた頭骨の立体構造や軟組織(皮膚や口の中の組織)の姿を解き明かしました。
シカゴ標本の頭骨の底や口の天井(口蓋骨・翼状骨など)は、非鳥類恐竜であるトロオドン科と、より進化した白亜紀の鳥類のちょうど中間に位置する移行形態を示していました。さらに2026年2月の研究では、上顎の天井に沿って、獲物を喉の奥へ確実に誘導し気管への誤嚥を防ぐ肉質の円錐状突起「口腔乳頭(こうくうにゅうとう)」の痕跡が、全化石記録を通じて史上初めて発見されました。同時に、柔軟で可動性の高い舌を支える微細な「舌骨(ぜっこつ)」や、顎の先端に神経が通る微細なトンネル群があり、地中や樹皮の隙間を探って獲物を識別する高感度な感覚器「嘴端器官(したんきかん)」を備えていたことも判明しました。
羽ばたき飛行は、陸上での歩行や水中での遊泳と比べて圧倒的に多くのカロリーを消費します。始祖鳥が空へ進出した際、その莫大なエネルギー消費を満たすために、鋭敏なセンサーで獲物を探知し(嘴端器官)、器用な舌で捕らえ(舌骨)、素早く確実に飲み込む(口腔乳頭)という口腔システム全体の効率化が、飛行能力の獲得と密接に連動して進化していたのです。また、手足の皮膚や肉球(パッド)の軟組織痕跡からは、手の第3指(小指にあたる指)の先端が皮膚から独立して動かせたため木登りや獲物の把握が可能であった一方、足裏の肉球は獲物を捕殺する猛禽類型ではなく、主に地上を歩き回るのに適した構造であったことが分かっています。
また、骨の微細構造(骨組織学)や発生学の観点からも重要な事実が判明しています。現代の鳥類は豊富な血管が通る骨を急速に作ることで、孵化から数週間〜数ヶ月で成体になりますが、かつて始祖鳥も同様に急成長していたと考えられていました。しかし2009年の骨断面組織の研究により、始祖鳥の長骨は血管がほとんど通っていない「平行繊維骨」でできており、成長の一時停止を示す「成長停止線(LAGs)」も刻まれていることが分かりました。始祖鳥は1日あたり約1.87〜2.2グラムというゆっくり成長し、成体サイズに達するまで約2.6〜3年(約970日)を要していたのです。これは変温動物だったからではなく、鳥類への進化の過程で体が極端に小型化したため、骨の内部に血管網を作らなくても周囲の膜からの拡散だけで栄養供給が間に合うようになった結果であり、代謝率は温血動物(内温性)の範囲内にありました。
進化発生学の謎:「翼の3本の指」とフレームシフト仮説
始祖鳥や獣脚類恐竜の手の3本の指は、骨の数(指骨が2節・3節・4節)から見て明確に五指動物の「第1・第2・第3指(親指・人差し指・中指)」です。ところが、現代の鳥(ニワトリなど)の受精卵(胚)が成長する過程を観察すると、軟骨の元になる組織が「第2・第3・第4指」の位置から発生するため、長年にわたり古生物学と発生学の間の大きな矛盾となっていました。この問題は、発生の途中で指の形を決定する遺伝子(Hox遺伝子群)の働く領域が1つ分後ろへズレる「フレームシフト(1,2,3 = 2,3,4)」が起きたことで解決されました。つまり、位置としては2・3・4番目の場所から発生しつつも、遺伝子の働きによって1・2・3番目の指の形が作られていたのであり、始祖鳥の指はこの進化の仕組みを解き明かす基準点となっています。
奇跡の保存状態 - ゾルンホーフェン古多島海の環境
始祖鳥の全標本が産出するドイツ南部バイエルン州のフランケン・アルプ地域は、約1億5200万〜1億4850万年前のジュラ紀後期には、テチス海の北縁に位置する亜熱帯の「ゾルンホーフェン古多島海」を形成していました。そこにはサンゴ礁や海綿礁によって外洋から隔てられた多数のラグーン(潟湖)や海盆が点在していました。
ラグーンの底部は、海水の蒸発による高塩分化と水の層が混ざり合わない成層化によって、酸素がほとんどない(貧酸素〜無酸素)状態が保たれていました。そのため、海底には死骸を食い荒らす腐肉食動物や、泥をかき回す生物が存在しませんでした。
ゾルンホーフェン博物館 - ブルガーマイスター・ミュラー博物館(Museum-Solnhofen | Bürgermeist-Müller-Museum,Germany.)
島々や沿岸部からラグーンへ落下して溺死した始祖鳥の個体は、数時間から数日ほど水面を漂流した後に沈み、きめ細かい炭酸カルシウムの泥(ミクライト)によって急速に埋没しました。ベルリン標本など多くの関節がつながった標本では、死後の靭帯の収縮や中枢神経系の無酸素状態によって、頭や首が背中側へ強く反り返る「後弓反張(こうきゅうはんちょう)」と呼ばれる姿勢で保存されています。
また、地層学的には、標本の大部分は古い「アルトミュールタール層(伝統的なゾルンホーフェン層)」から産出していますが、ダイティング標本(第8標本)やカールスルーエ標本(第13標本)、別属のアルクモナビスなどは、その上位に重なるより新しい「メルンスハイム層」から見つかっています。この約200万〜300万年に及ぶ地層の広がりは、ゾルンホーフェン古多島海における初期鳥類の進化が単一時点の静止画ではなく、時間とともに飛翔能力を高めながら種分化していった記録であることを示しています。
全標本群の総覧と分類学的多様性
現在までに知られている始祖鳥(および近縁なゾルンホーフェン鳥翼類)の化石記録は、1点の単離羽毛標本と14点の体骨格標本(および別属記載されたミュールハイム標本など)から構成されています。これらが単一の種(アーケオプテリクス・リトグラフィカ)の個体差や成長段階なのか、それとも複数の種や属を含む多様なグループなのかという問題は長年議論されてきました。
2026年に発表されたクリスチャン・フォスとオリバー・ラウフートによる包括的な再検討研究(Foth & Rauhut, 2026)などにより、主要な標本群は単系統の『アーケオプテリクス属(Archaeopteryx)』を形成し、その内部に複数の種(A. lithographica、A. siemensii、A. albersdoerferiなど)が存在する一方、より新しいメルンスハイム層から産出した大型の『アルクモナビス(Alcmonavis poeschli)』は始祖鳥よりも現代の鳥に近い独立した別属であることが確認されています(なお、ハールレム標本に基づき提唱された『オストロミア』については、保存部位の制約から属レベルの特定が難しい不定の鳥翼類とする見解と、アーケオプテリクス属に含める見解が議論されています)。
| 標本呼称(通称) | 発見年(公表年) | 産出層準・所蔵機関 | 主な特徴・分類学的ステータス |
|---|---|---|---|
| 単離羽毛標本 (The Feather) |
1860/1861 (1861記載) |
アルトミュールタール層 ミュンヘン / ベルリン |
全長58mm、幅12mmの非対称羽。マットな黒色と推定。現在はロンドン標本が新模式標本に指定されており、別種の羽毛恐竜に由来する可能性も議論される。 |
| 第1:ロンドン標本 (London) |
1861 (1863記載) |
アルトミュールタール層 ロンドン自然史博物館 |
ブーメラン状の叉骨(角度約75度)、23個の尾椎、明瞭な風切羽印象、脳函を保存。模式種 Archaeopteryx lithographica の新模式標本(ネオタイプ)。 |
| 第2:ベルリン標本 (Berlin) |
1874–1876 (1884記載) |
アルトミュールタール層 ベルリン自然史博物館 |
頭骨・下顎を含む極めて完全な関節骨格と両翼・尾の羽毛印象。歯の中央にくびれを持つ特徴などから独立種 Archaeopteryx siemensii とされる。 |
| 第3:マックスベルク標本 (Maxberg) |
1956 (1959記載) |
アルトミュールタール層 個人蔵(1991年以降行方不明) |
頭部と尾を欠く体幹・四肢骨格。死後の長期間の漂流により関節が離脱。指の角質の爪鞘が保存。Archaeopteryx sp. |
| 第4:ハールレム標本 (Haarlem) |
1855 (1970同定) |
アルトミュールタール層 テイラーズ博物館(オランダ) |
実質的に最古の発見標本(当初は翼竜と誤認)。2017年に別属 Ostromia crassipes とされたが、2026年の再検討では疑問名(不定の鳥翼類)またはシノニムと議論。 |
| 第5:アイヒシュテット標本 (Eichstätt) |
1951 (1974記載) |
アルトミュールタール層 ジュラ博物館 |
シカゴ標本登場まで最小であった完全な関節骨格。頭骨と歯列、四肢骨が良好に保存。Archaeopteryx lithographica(別属 Jurapteryx の提唱歴あり)。 |
| 第6:ゾルンホーフェン標本 (Solnhofen) |
1970年代 (1988記載) |
アルトミュールタール層 ブルガーマイスター・ミュラー博物館 |
最大級の骨格標本(全長約50cm)。中足骨近位の癒合傾向や第4趾の趾骨減少(4節)から別属 Wellnhoferia grandis または A. lithographica の大型個体とされる。 |
| 第7:ミュンヘン標本 (Munich) |
1992 (1993記載) |
アルトミュールタール層 ミュンヘン古生物学博物館 |
腐敗空洞に方解石などが充填された立体保存(レリーフ仮像)。後肢の羽毛や尾羽が明瞭。A. bavarica または A. siemensii とされる。 |
| 第8:ダイティング標本 (Daiting) |
1990年代 (2009公表) |
メルンスハイム層 バイエルン州立古生物コレクション |
より若い地層から産出。頭蓋骨の癒合と空洞化(含気化)、叉骨や前肢の飛翔適応の進行が確認され、独立種 Archaeopteryx albersdoerferi として記載。 |
| 第9:ブルガーマイスター・ミュラー標本 | 2000 (2004公表) |
アルトミュールタール層 ブルガーマイスター・ミュラー博物館 |
通称「チキン・ウィング」。立体保存された右前肢のみの断片。未成熟な骨表面と初列風切羽の軸の印象を残す。Archaeopteryx sp. |
| 第10:サーモポリス標本 (Thermopolis) |
2001公表 (2005記載) |
アルトミュールタール層 ワイオミング恐竜センター(米国) |
頭骨が立体的に保存。足の親指(第1趾)が後方へ反転していないこと、第2趾がドロマエオサウルス科のように過伸展可能であったことを実証。A. siemensii。 |
| 第11:アルトミュール標本 (11th Specimen) |
2011公表 (2014記載) |
アルトミュールタール層 民間所有(公的登録済) |
頭骨から尾、後肢に至る全身の正羽が極めて明瞭に保存。羽毛が本来は保温やディスプレイ用に進化した外適応であることを解明。Archaeopteryx sp. |
| 第12:シャムハウプテン標本 (12th Specimen) |
2010発見 (2014公表) |
アルトミュールタール層最下部 アルトミュールタール恐竜博物館 |
約1億5200万年前の最古層準に由来するほぼ関節した全身骨格(頭骨56.0mm、上腕骨61.0mm、脛骨66.0mm)。Archaeopteryx sp. |
| (関連)ミュールハイム標本 (Mühlheim) |
2017発見 (2019記載) |
メルンスハイム層 バイエルン州立古生物コレクション |
当初「第13標本」と報道された右翼骨格。ゾルンホーフェン標本の111%に達するジュラ紀最大の鳥翼類。強大な筋肉付着部を持ち、別属新種 Alcmonavis poeschli として記載。 |
| 第13:カールスルーエ標本 (Karlsruhe) |
2024/2025記載 | メルンスハイム層 カールスルーエ自然史博物館 |
右前肢・肩帯(烏口骨・肩甲骨)および左前肢・両後肢の断片。橈骨に二頭筋結節を保持。単系統の Archaeopteryx 属に帰属。 |
| 第14:シカゴ標本 (Chicago) |
1990以前発見 (2024公開/2025記載) |
アルトミュールタール層 フィールド自然史博物館(米国) |
左手主指末節骨のみを欠くほぼ100%完全な三次元関節骨格。既知最小個体。三列風切羽、口蓋部、口腔乳頭、舌骨、嘴端器官、24個の尾椎を保存。Archaeopteryx sp. |
ロンドン標本 (標本番号BMNH 37001)
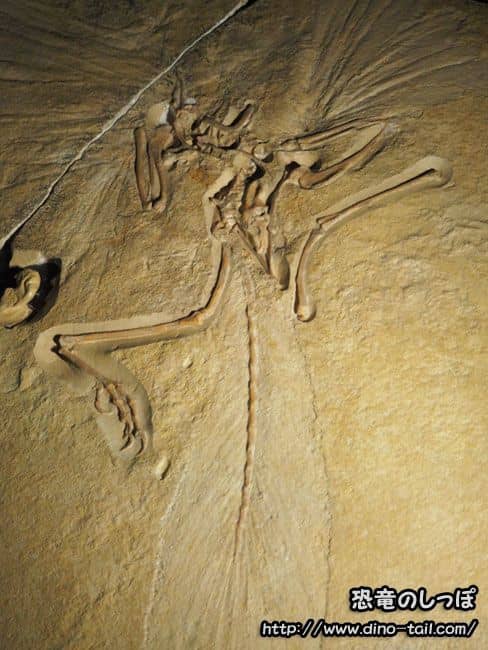
1861年に発見された最初の骨格標本であり、現在では模式種『アーケオプテリクス・リトグラフィカ(Archaeopteryx lithographica)』の新模式標本(ネオタイプ)に指定されています。頭骨の大部分を欠いていますが、脳函(のうかん)や内耳、ブーメラン状の叉骨、23個の尾椎、そして明瞭な風切羽の印象が残されています。CTスキャンによる脳函の解析から、すでに脳の視覚野が拡大し、現代の鳥類に似た三半規管の配置が確立していたことが証明されています。
ベルリン標本 (標本番号MB.Av.101 / HMN 1880/81)
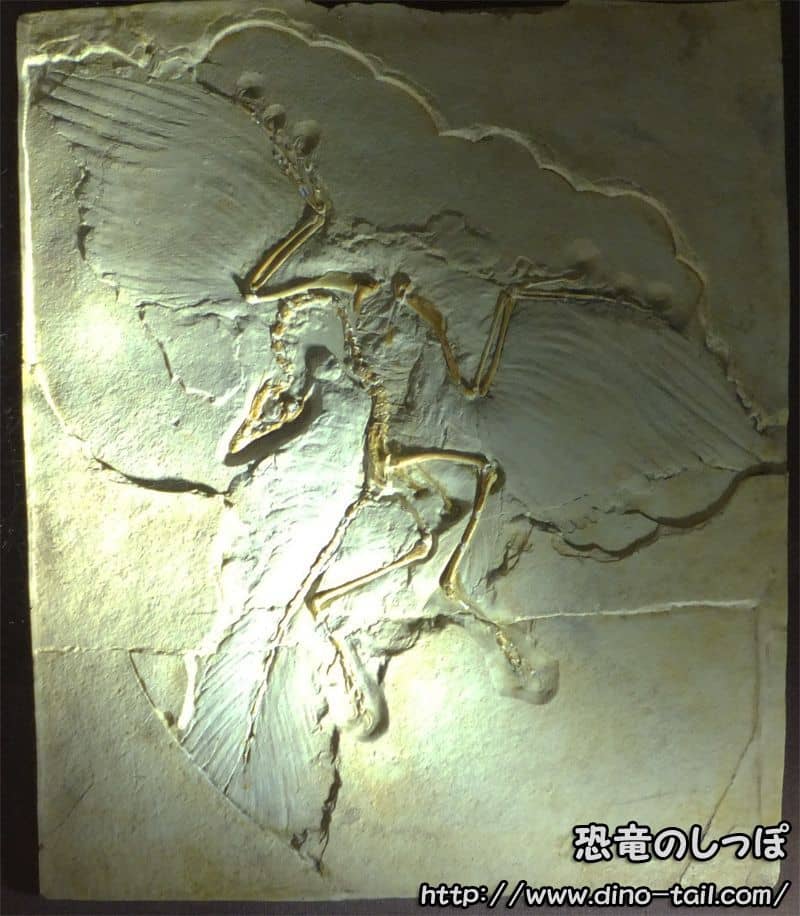
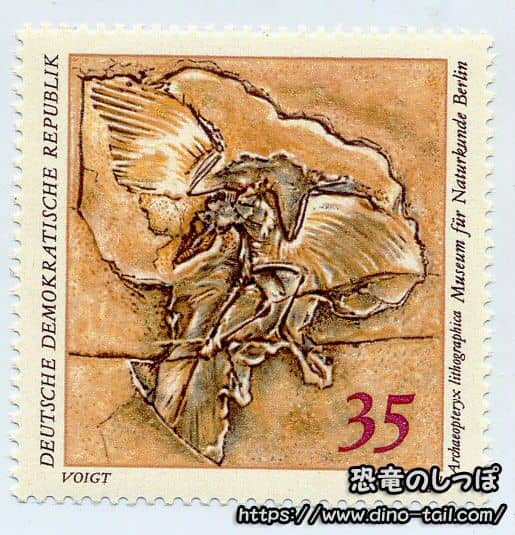
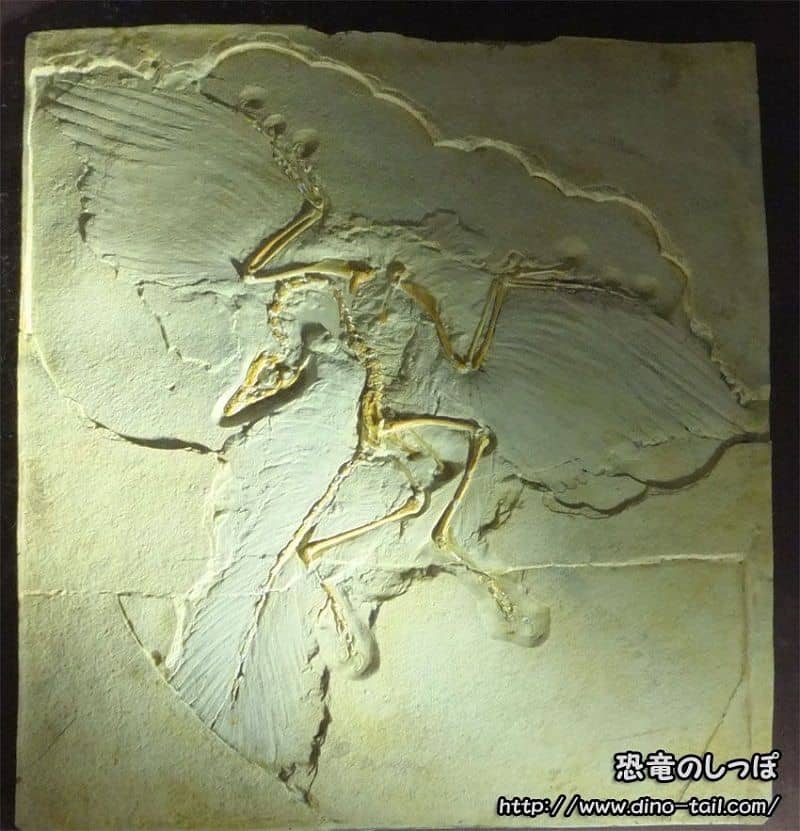
1874年から1876年の間に発見された、最も有名で美しい全身関節骨格です。上顎の片側に12本の歯が並ぶ頭骨や、両翼・尾の羽毛印象が鮮明に残っており、首が背中側へ強く反り返る「後弓反張」の姿勢を示しています。ロンドン標本とは歯の形状(中央部にわずかな括れがあり先端が後方へ湾曲する)や四肢の比率、烏口骨の形が異なるため、独立種『アーケオプテリクス・シーメンシィ(Archaeopteryx siemensii)』として広く認められています。
ゾルンホーフェン標本 (標本番号BSP 1999 / BMMS 500)
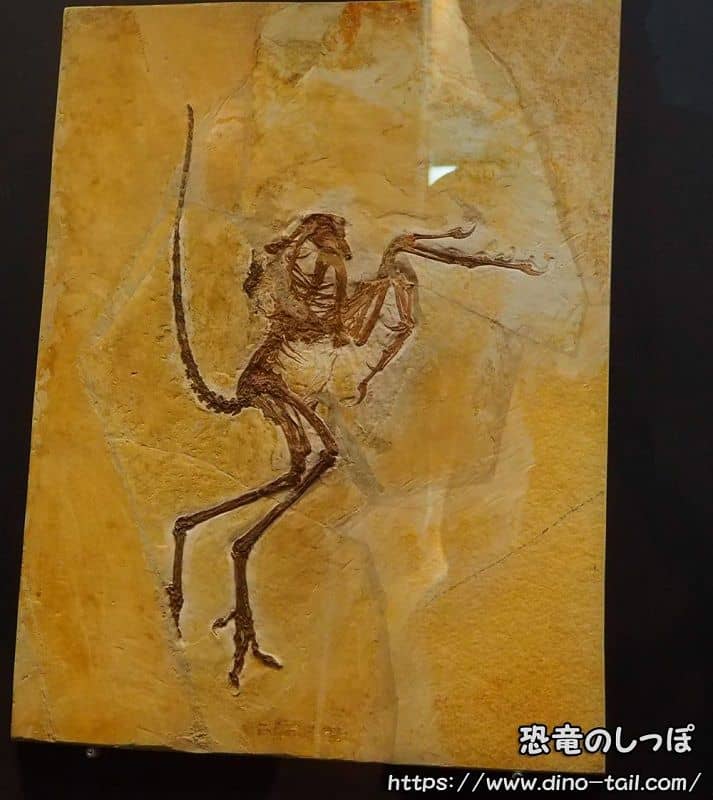
1970年代に発見され1988年に記載された、全長約50センチメートルに達する最大級の骨格標本です。中足骨の根元が癒合する傾向や、足の4番目の指(第4趾)の骨が通常の5節から4節に短縮している点などから、2001年に別属新種『ウェルンホフェリア・グランディス(Wellnhoferia grandis)』とする説が提唱されましたが、リトグラフィカ種の大型成熟個体または属内別種と見なす研究者も多くいます。
アイヒシュテット標本 (標本番号JM 2257)
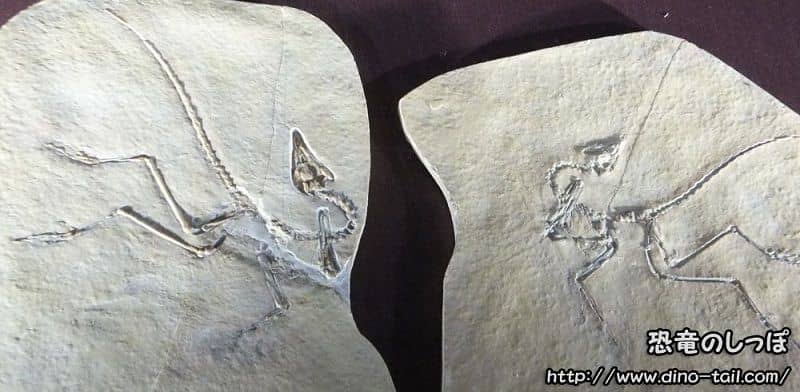
1951年に発見され1974年に記載された標本で、シカゴ標本が登場するまでは最小の個体でした。羽毛の印象は微弱ですが、頭骨や歯列、四肢の骨格が良好な状態で関節して保存されています。
ダイティング標本(第8標本)・ミュールハイム標本・カールスルーエ標本(第13標本)
これら3つの標本は、通常のゾルンホーフェン石灰岩(アルトミュールタール層)よりも新しい時代の「メルンスハイム層」から産出した重要な化石群です。ダイティング標本は頭蓋骨の癒合や内部の空洞化(含気化)が進み、前肢の筋肉付着部も発達していることから、より進化した新種『アーケオプテリクス・アルベルスドエルフェリ(Archaeopteryx albersdoerferi)』と命名されました。また、2017年に発見されたミュールハイム標本は上腕骨の長さが約9センチメートル(ゾルンホーフェン標本の111%)に達するジュラ紀最大の鳥翼類であり、強大な胸筋や腕の筋肉が付着する突起を備えていたことから、始祖鳥よりも現代の鳥に近い別属新種『アルクモナビス・ポエシュリ(Alcmonavis poeschli)』として記載されました。一方、2024〜2025年に記載されたカールスルーエ標本は、同じメルンスハイム層にアーケオプテリクス属も共存していたことを示しています。
シカゴ標本 (標本番号FMNH PA 830)
1990年以前に発見され、2024年に米国のシカゴ・フィールド自然史博物館で公開された最新の第14骨格標本です。既知の標本の中で最小の個体(上腕骨の長さがアイヒシュテット標本の96%)でありながら、左手の第2指の先端(末節骨)1個を除くすべての骨が、ほぼ押し潰されることなく立体的に関節して保存されています。さらに、商業的な粗いクリーニングを受ける前の状態で博物館に到着したため、新谷明子氏ら専門プレパレーターが1年以上をかけて高解像度CTデータと紫外線ライトを併用しながら緻密なクリーニングを行うことができました。その結果、24個の尾椎からなる完全な脊柱、飛翔を可能にした「三列風切羽」、さらには「口腔乳頭」「舌骨」「嘴端器官」、手足の皮膚や足裏の肉球に至るまで、始祖鳥の生態と進化の謎を解き明かす歴史的な大発見が次々ともたらされました。
アーケオプテリクス | 始祖鳥の切手・化石ギャラリー