Datos básicos de Archaeopteryx
| Nombre científico (Género) | Archaeopteryx |
| Significado del nombre |
Ala antigua
archaio (antiguo) [Griego] - pteryx (ala) [Griego] |
| Clasificación | Saurisquios, Terópodos, Paraves (Avialae), Archaeopterygidae |
| Longitud total / Peso | Longitud: Aprox. 30-50 cm (del tamaño de un cuervo o paloma) / Peso estimado: Varios cientos de gramos hasta menos de 2 kg |
| Dieta | Carnívoro (insectos, animales pequeños, etc.) |
| Período | Jurásico Superior (Kimmeridgiense superior al Titoniense inferior: aprox. 152 a 148.5 millones de años) |
| Subclasificación / Nombre de la especie |
Archaeopteryx lithographica (especie tipo)
Archaeopteryx siemensii Archaeopteryx albersdoerferi |
| Año de descripción | 1861 |
| Publicación del nombre del género | von Meyer, H. (1861). Archaeopterix lithographica (Vogel-Feder) und Pterodactylus von Solnhofen. Neues Jahrbuch für Mineralogie, Geognosie, Geologie und Petrefakten-Kunde. |
Un símbolo que valida la teoría de la evolución
Archaeopteryx es la criatura prehistórica más icónica en la historia de la biología evolutiva, que vivió durante el período Jurásico Superior, hace aproximadamente 152 a 148,5 millones de años. El primer fósil del que derivó su nombre fue un "espécimen de pluma aislada" descubierto en la piedra caliza de Solnhofen en Baviera, Alemania, en 1860 o 1861. Fue nombrado "Archaeopteryx", que significa "ala antigua" en griego, por el paleontólogo alemán Hermann von Meyer.
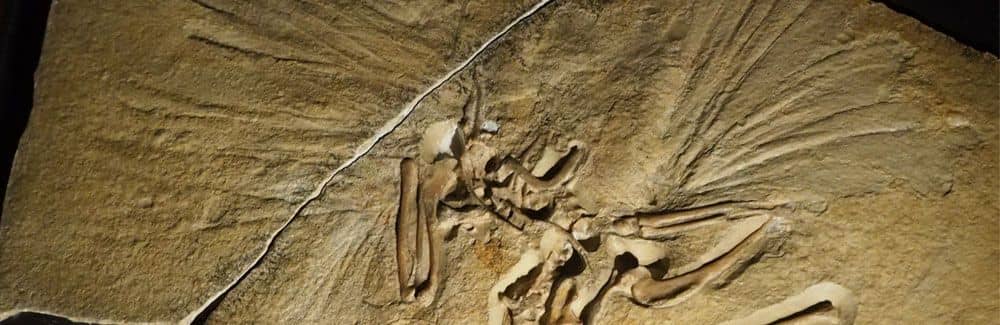
Poco después, en 1861, se descubrió el primer espécimen esquelético (el espécimen de Londres) que conservaba claramente las impresiones de las plumas. Esto ocurrió apenas dos años después de que Charles Darwin publicara "El origen de las especies". Poseyendo características de reptil (dinosaurio) como dientes afilados en sus mandíbulas, tres garras independientes en sus extremidades anteriores (alas) y una larga cola ósea, combinadas con características de aves como plumas de vuelo asimétricas, una fúrcula fusionada (hueso de los deseos) y una caja craneal parecida a la de un pájaro, este fósil conmocionó a la comunidad científica como evidencia definitiva de una transición evolutiva.
En 1868, Thomas Henry Huxley propuso el "origen dinosauriano de las aves" basándose en sus similitudes con el pequeño terópodo Compsognathus. Aunque esta teoría permaneció fuera de la corriente principal durante mucho tiempo, ganó atención en la década de 1970 cuando John Ostrom llevó a cabo una investigación anatómica comparativa detallada con Deinonychus (Dromaeosauridae). Además, desde finales del siglo XX hasta el siglo XXI, los sucesivos descubrimientos de fósiles de dinosaurios emplumados en la provincia de Liaoning, China, y otros lugares han cambiado la comprensión del Archaeopteryx. Una vez que se le dio un estatus aislado como el "ancestro único y directo de todas las aves modernas", ahora se entiende como una de las "aves más basales (Avialae)" posicionada dentro de la diversa evolución de Paraves (paravianos).
Color y función del espécimen de pluma aislada: Negro mate
Como resultado de examinar la fina estructura de los "melanosomas" (gránulos de pigmento) que quedaban en el primer fósil de pluma utilizando microscopios electrónicos de barrido, se reveló que esta pluma era rica en melanosomas en forma de bastón que aumentan la fuerza estructural, lo que indica que era de un color "negro mate" que se oscurecía hacia la punta. El pigmento de melanina negra mejora la resistencia al desgaste y la dureza de las fibras de queratina, funcionando como una adaptación vital para soportar las fuerzas aerodinámicas (cargas aerodinámicas) generadas durante el vuelo activo primitivo.
Aleteo tipo mariposa y el descubrimiento de las "plumas terciarias"
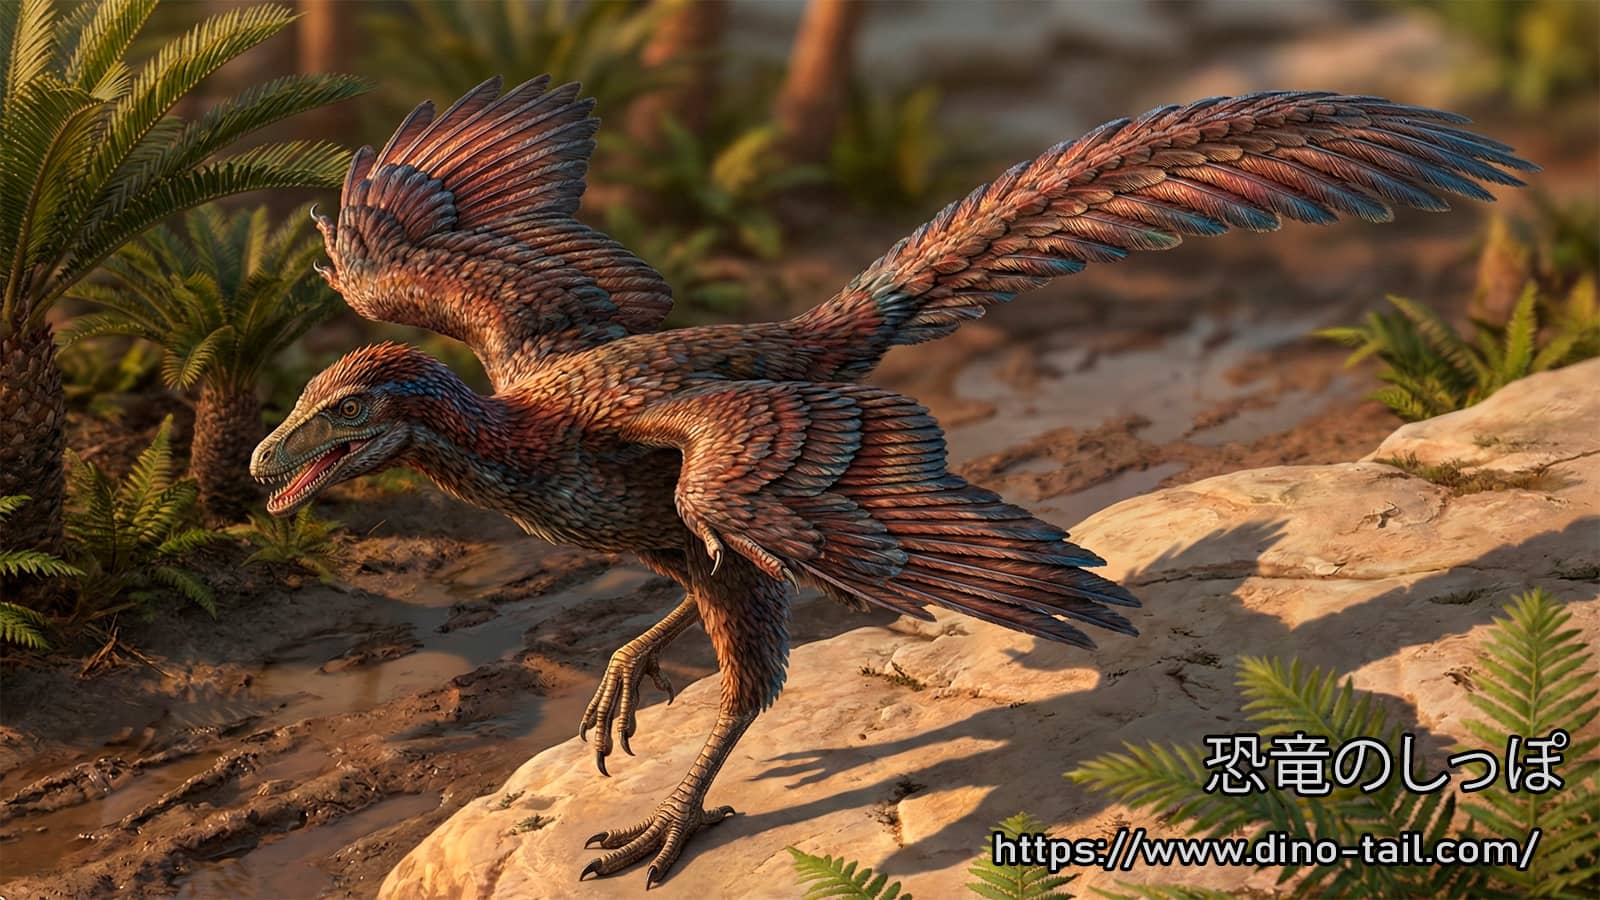
por Gemini.
Si el Archaeopteryx podía batir sus alas y volar por sí mismo o simplemente planear de árbol en árbol fue un tema de debate durante más de 150 años. La razón por la que se defendió una vez la teoría del planeo es que carecía de la "quilla" osificada (una proyección en el esternón) para sujetar los enormes músculos del pecho que se encuentran en las aves modernas (su esternón permaneció cartilaginoso), y la estructura del hombro (canal trióseo) que actúa como una polea para levantar rápidamente las alas hacia atrás también estaba incompleta.
Sin embargo, en 2018, una investigación que examinó las secciones transversales internas de los huesos de las alas (húmero y cúbito) mediante escaneos de rayos X de alta resolución en la Instalación Europea de Radiación Sincrotrón (ESRF) resolvió este debate. Los huesos de las alas del Archaeopteryx tenían paredes extremadamente delgadas (la pared ósea cubital tenía unos 0,16 a 0,18 milímetros) y poseían una alta resistencia contra las fuerzas de torsión. Esta estructura no coincidía en absoluto con las aves planeadoras, sino con los faisanes y correcaminos modernos, que aletean poderosamente en distancias cortas para escapar de los depredadores o sortear obstáculos. En lugar de mover sus alas hacia arriba y hacia abajo como las aves modernas, el Archaeopteryx compensaba las limitaciones de los hombros usando un aleteo único, girando sus alas diagonalmente de anterodorsal a posteroventral, similar al estilo "mariposa" en natación, logrando el vuelo activo.
Además, a la pregunta de por qué solo el Archaeopteryx podía volar cuando los dinosaurios emplumados no voladores como Anchiornis también tenían plumas largas en sus extremidades anteriores, la investigación sobre el decimocuarto espécimen esquelético, el "espécimen de Chicago", publicado en 2025, proporcionó una respuesta definitiva. El espécimen de Chicago conservó claramente plumas de vuelo internas llamadas "plumas terciarias" en la parte superior del brazo. En los dinosaurios emplumados no voladores, las plumas de las alas terminaban en el codo (cúbito), dejando un gran espacio entre la parte superior del brazo y el cuerpo, lo que provocaba una fuga de aire, generando turbulencia y perdiendo sustentación. Por el contrario, el Archaeopteryx evolucionó con éxito plumas terciarias largas para llenar este espacio, creando una superficie aerodinámica continua en el ala desde la punta del ala hasta el cuerpo.
Rechazo de la hipótesis de planeo de "4 alas" y la "exaptación" de las plumas
Con el descubrimiento del Microraptor y otros, hubo un período en el que la hipótesis de que "el vuelo aviar evolucionó a través de una etapa de planeo de cuatro alas usando tanto las extremidades anteriores como las posteriores como alas" fue fuertemente apoyada. Sin embargo, la investigación sobre el undécimo espécimen (espécimen de Altmühl) reportada en 2014 rechazó esta hipótesis. Los "pantalones de plumas" de 25 a 40 milímetros de largo que crecían en las extremidades posteriores del Archaeopteryx eran simétricos e inadecuados para generar sustentación. Las plumas penáceas (plumas de tipo moderno con un raquis y vexilo) evolucionaron originalmente para la retención de calor, la incubación o exhibiciones visuales como el cortejo, y las plumas de las extremidades posteriores solo se usaron secundariamente para la desaceleración durante el aterrizaje (frenos de aire). Este mecanismo evolutivo, donde un rasgo evolucionado para un propósito se reutiliza más tarde para una nueva función como el vuelo, se llama "exaptación".
La revolución alimentaria en la boca, la tasa de crecimiento y el misterio de los dedos de las alas
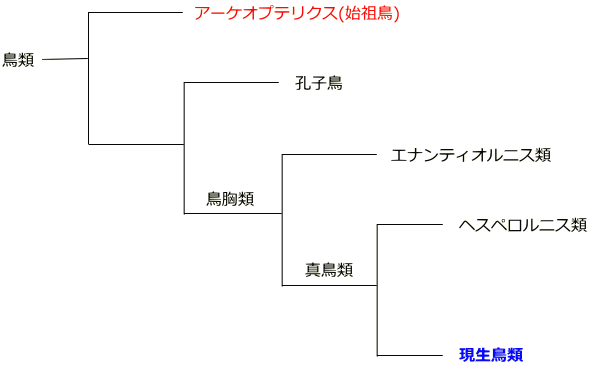
Evolucionó a partir de un grupo de dinosaurios llamados Paraves.
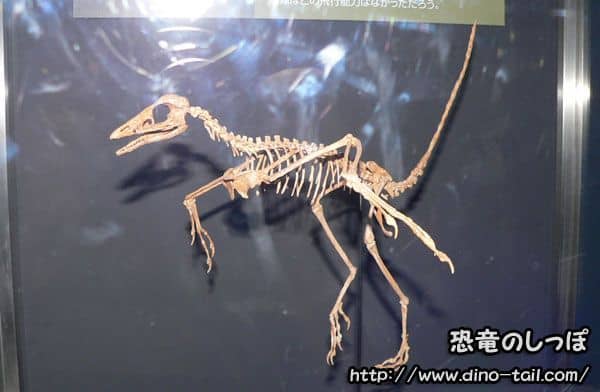
El esqueleto de Archaeopteryx encarna la "evolución en mosaico", donde las características de dinosaurio y de ave evolucionaron a diferentes ritmos dependiendo de la parte del cuerpo. En particular, el escaneo CT de ultra alta resolución y el análisis de irradiación ultravioleta (UV) del espécimen de Chicago publicado entre 2025 y 2026 desentrañó la estructura tridimensional antes misteriosa del cráneo y los tejidos blandos (piel y tejidos dentro de la boca).
La base del cráneo y el paladar (palatino, pterigoideo, etc.) del espécimen de Chicago mostraron una morfología de transición situada justo entre los dinosaurios troodóntidos no avianos y las aves cretácicas más avanzadas. Además, en una investigación de febrero de 2026, se descubrieron por primera vez en todo el registro fósil rastros de "papilas orales", proyecciones carnosas en forma de cono a lo largo del techo de la mandíbula superior que guían de manera confiable a las presas a la parte posterior de la garganta y previenen la aspiración en la tráquea. Simultáneamente, también se reveló que poseía diminutos "huesos hioides" que sostenían una lengua flexible y altamente móvil, y un "órgano de la punta del pico", un órgano sensorial altamente sensible con diminutos túneles nerviosos en la punta de la mandíbula utilizado para sondear e identificar presas en el suelo o en las grietas de la corteza.
El vuelo activo consume una cantidad abrumadoramente mayor de calorías en comparación con caminar en tierra o nadar en el agua. Cuando el Archaeopteryx surcó los cielos, para satisfacer su enorme consumo de energía, la racionalización de todo el sistema oral (detectar presas con sensores agudos (órgano de la punta del pico), atraparlas con una lengua diestra (hueso hioides) y tragarlas rápida y de forma segura (papilas orales)) evolucionó en estrecha coordinación con la adquisición de las capacidades de vuelo. Además, los rastros de tejidos blandos de piel y almohadillas en las plantas de los pies (tori) en sus extremidades muestran que si bien la punta de su tercer dedo de la mano (correspondiente al dedo meñique) podía moverse independientemente de la piel, permitiendo trepar y agarrar presas, las almohadillas en las plantas de sus pies no eran del tipo rapaz para matar presas, sino que tenían una estructura principalmente adecuada para caminar por el suelo.
También se han descubierto hechos importantes desde la perspectiva de la microestructura ósea (osteohistología) y la embriología. Las aves modernas alcanzan el tamaño adulto en unas pocas semanas o meses construyendo rápidamente huesos ricos en vasos sanguíneos después de la eclosión, y alguna vez se pensó que el Archaeopteryx también creció rápidamente de manera similar. Sin embargo, un estudio de 2009 de las secciones transversales de los huesos reveló que los huesos largos del Archaeopteryx estaban hechos de "hueso de fibras paralelas" con muy pocos vasos sanguíneos, y también contenían "líneas de detención del crecimiento (LAGs)" que indicaban pausas temporales en el crecimiento. El Archaeopteryx creció lentamente, a unos 1,87 a 2,2 gramos por día, y requirió alrededor de 2,6 a 3 años (aprox. 970 días) para alcanzar el tamaño adulto. Esto no se debió a que fuera de sangre fría, sino a que durante su evolución hacia las aves, su tamaño corporal se volvió extremadamente miniaturizado, lo que significa que el suministro de nutrientes por difusión a través de las membranas circundantes era suficiente sin construir una red vascular dentro del hueso. Su tasa metabólica se mantuvo dentro del rango de los animales de sangre caliente (endotermia).
Misterio del desarrollo evolutivo: Los "3 dedos del ala" y la hipótesis de cambio de marco (frameshift)
Los tres dedos en las manos del Archaeopteryx y los dinosaurios terópodos son claramente el "primer, segundo y tercer dedo" (pulgar, índice y dedo medio) de los animales pentadáctilos, a juzgar por la cantidad de huesos (las falanges son 2, 3 y 4 segmentos). Sin embargo, al observar el proceso de desarrollo de los embriones de aves modernas (como el pollo), los tejidos cartilaginosos se desarrollan a partir de las posiciones del "segundo, tercer y cuarto dedo", creando una gran contradicción entre la paleontología y la embriología durante muchos años. Este problema se resolvió mediante la hipótesis de "cambio de marco" (1,2,3 = 2,3,4), donde la región de expresión génica (genes Hox) que determina la forma de los dedos durante el desarrollo se desplazó una posición hacia atrás. En otras palabras, mientras se desarrollaban desde las ubicaciones físicas de la 2ª, 3ª y 4ª posiciones, los genes estaban operando para formar las formas del 1º, 2º y 3º dedo. Los dedos del Archaeopteryx sirven como punto de referencia para desentrañar este mecanismo evolutivo.
Estado de preservación milagroso - El entorno del paleo-archipiélago de Solnhofen
La región de Franconia Alb en Baviera, en el sur de Alemania, donde se han descubierto todos los especímenes de Archaeopteryx, formó el subtropical "paleo-archipiélago de Solnhofen" situado en el borde norte del Mar de Tetis durante el período Jurásico Superior, hace aproximadamente 152 a 148,5 millones de años. Numerosas lagunas y cuencas estaban dispersas allí, separadas del océano abierto por arrecifes de coral y esponjas.
El fondo de las lagunas mantuvo un estado casi libre de oxígeno (de hipóxico a anóxico) debido a la alta salinidad por la evaporación del agua de mar y la estratificación donde las capas de agua no se mezclaban. Por lo tanto, no había animales carroñeros para devorar los cadáveres ni organismos para agitar el lodo en el fondo marino.
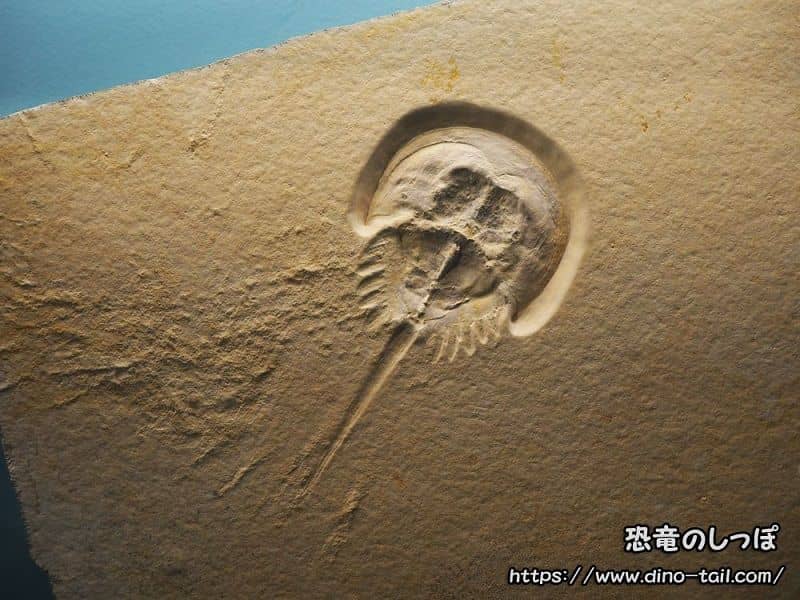
Museo Solnhofen - Bürgermeister-Müller-Museum, Alemania.
Los Archaeopteryx individuales que cayeron en las lagunas desde las islas o las costas y se ahogaron quedaron a la deriva en la superficie durante horas o días antes de hundirse, y fueron enterrados rápidamente por un fino barro de carbonato de calcio (micrita). En muchos especímenes articulados, como el espécimen de Berlín, se conservan en una postura llamada "opistótonos" (pose de muerte), donde la cabeza y el cuello están fuertemente arqueados hacia atrás sobre la columna vertebral, causado por la contracción de los ligamentos post mortem o la anoxia en el sistema nervioso central.
Estratigráficamente, la mayoría de los especímenes provienen de la más antigua "Formación Altmühltal" (la tradicional Formación Solnhofen). Sin embargo, el espécimen de Daiting (8vo espécimen), el espécimen de Karlsruhe (13vo espécimen) y el género distinto Alcmonavis se encontraron en la "Formación Mörnsheim" más joven que la recubre. Esta propagación geológica que abarca alrededor de 2 a 3 millones de años indica que la evolución de las primeras aves en el paleo-archipiélago de Solnhofen no fue una instantánea estática en un solo punto en el tiempo, sino un registro de especiación mientras se mejoraban las capacidades de vuelo con el tiempo.
Descripción completa de todos los grupos de especímenes y diversidad taxonómica
El registro fósil del Archaeopteryx (y avialanos de Solnhofen estrechamente relacionados) conocido hasta la fecha consta de 1 espécimen de pluma aislada y 14 especímenes esqueléticos (así como el espécimen de Mühlheim descrito como un género separado, etc.). Durante años se ha debatido si estos representan variaciones individuales o etapas de crecimiento de una sola especie (Archaeopteryx lithographica), o un grupo diverso que contiene múltiples especies y géneros.
Según las reevaluaciones exhaustivas publicadas en 2026 por Christian Foth y Oliver Rauhut (Foth & Rauhut, 2026), los principales grupos de especímenes forman un género monofilético Archaeopteryx, que contiene múltiples especies en su interior (como A. lithographica, A. siemensii y A. albersdoerferi). Mientras tanto, el gran Alcmonavis poeschli de la Formación Mörnsheim más joven se confirma como un género independiente y distinto más cercano a las aves modernas que el Archaeopteryx. (Nota: Con respecto a Ostromia, propuesta basada en el espécimen de Haarlem, existen opiniones encontradas sobre si es un avialano indeterminado difícil de asignar a nivel de género debido a los límites de conservación, o si debe incluirse en el género Archaeopteryx).
| Nombre del espécimen (Nombre común) | Año de descubrimiento (Publicación) | Horizonte estratigráfico e institución | Características principales y estado taxonómico |
|---|---|---|---|
| Pluma aislada (The Feather) |
1860/1861 (1861) |
Fm. Altmühltal Múnich / Berlín |
Pluma asimétrica de 58 mm. Se estima negro mate. Actualmente el espécimen de Londres es el neotipo; podría pertenecer a otro dinosaurio emplumado. |
| 1ro: Londres (London) |
1861 (1863) |
Fm. Altmühltal Museo de Historia Natural de Londres |
Fúrcula en forma de bumerán, 23 vértebras caudales, plumas de vuelo claras, caja craneal. Neotipo de Archaeopteryx lithographica. |
| 2do: Berlín (Berlin) |
1874–1876 (1884) |
Fm. Altmühltal Museo de Historia Natural de Berlín |
Esqueleto articulado extremadamente completo que incluye el cráneo y las impresiones de las plumas de alas y cola. Los dientes sugieren la especie independiente Archaeopteryx siemensii. |
| 3ro: Maxberg (Maxberg) |
1956 (1959) |
Fm. Altmühltal Privado (desaparecido desde 1991) |
Torso y extremidades sin cabeza ni cola. Vainas córneas de las garras conservadas. Archaeopteryx sp. |
| 4to: Haarlem (Haarlem) |
1855 (1970) |
Fm. Altmühltal Museo Teylers (Países Bajos) |
Prácticamente el espécimen más antiguo (inicialmente identificado erróneamente como pterosaurio). Asignado a Ostromia crassipes en 2017, discutido como dudos o sinónimo en 2026. |
| 5to: Eichstätt (Eichstätt) |
1951 (1974) |
Fm. Altmühltal Museo Jura |
Esqueleto completo más pequeño hasta el espécimen de Chicago. Buen cráneo, dientes y extremidades. Archaeopteryx lithographica. |
| 6to: Solnhofen (Solnhofen) |
década de 1970 (1988) |
Fm. Altmühltal Bürgermeister-Müller-Museum |
El esqueleto más grande (aprox. 50 cm). Wellnhoferia grandis o A. lithographica grande. |
| 7mo: Múnich (Munich) |
1992 (1993) |
Fm. Altmühltal Museo Paleontológico de Múnich |
Preservación tridimensional en calcita. Plumas de las extremidades posteriores y de la cola claras. A. bavarica o A. siemensii. |
| 8vo: Daiting (Daiting) |
década de 1990 (2009) |
Fm. Mörnsheim Colección Estatal de Paleontología de Baviera |
Estratos más jóvenes. Fusión craneal, neumaticidad y adaptaciones de vuelo avanzadas. Descrito como Archaeopteryx albersdoerferi. |
| 9no: Bürgermeister-Müller | 2000 (2004) |
Fm. Altmühltal Bürgermeister-Müller-Museum |
"Ala de pollo". Fragmento tridimensional de la extremidad anterior derecha. Archaeopteryx sp. |
| 10mo: Thermopolis (Thermopolis) |
2001 (2005) |
Fm. Altmühltal Centro de Dinosaurios de Wyoming (EE. UU.) |
Cráneo en 3D. Mostró que el primer dedo del pie no estaba invertido y el segundo dedo era hiperextensible como los dromeosáuridos. A. siemensii. |
| 11vo: Altmühl (11th Specimen) |
2011 (2014) |
Fm. Altmühltal Privado (registrado) |
Plumas penáceas extremadamente claras en todo el cuerpo. Demostró que las plumas eran una exaptación. Archaeopteryx sp. |
| 12vo: Schamhaupten (12th Specimen) |
2010 (2014) |
Fm. Altmühltal más baja Museo de Dinosaurios Altmühltal |
El esqueleto articulado más antiguo (152 millones de años). Archaeopteryx sp. |
| (Relacionado) Mühlheim (Mühlheim) |
2017 (2019) |
Fm. Mörnsheim Colección Estatal de Paleontología de Baviera |
El avialano jurásico más grande. Fuertes inserciones musculares. Alcmonavis poeschli. |
| 13vo: Karlsruhe (Karlsruhe) |
2024/2025 | Fm. Mörnsheim Museo de Historia Natural de Karlsruhe |
Fragmentos de extremidades. Pertenece a Archaeopteryx. |
| 14vo: Chicago (Chicago) |
Antes de 1990 (2024/2025) |
Fm. Altmühltal Museo Field (EE. UU.) |
Esqueleto 3D casi 100% completo. El más pequeño. Plumas terciarias, papilas orales, hioides, órgano de la punta del pico. Archaeopteryx sp. |
Espécimen de Londres (BMNH 37001)
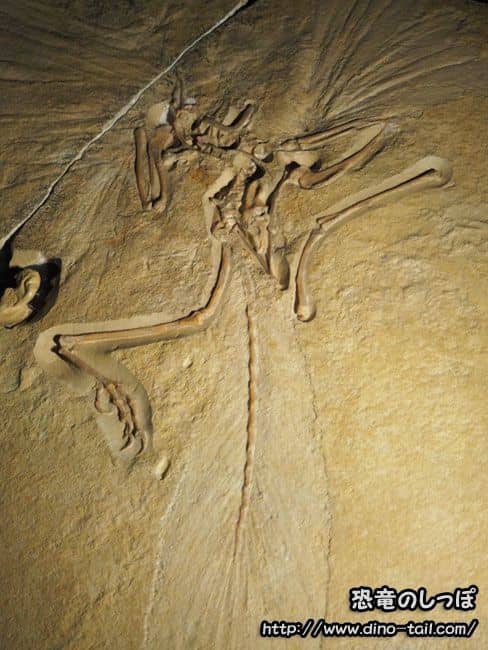
Descubierto en 1861, fue el primer espécimen esquelético y ahora está designado como el neotipo para la especie tipo Archaeopteryx lithographica. Aunque carece de la mayor parte del cráneo, conserva la caja craneal, el oído interno, la fúrcula en forma de bumerán, 23 vértebras caudales y claras impresiones de plumas de vuelo. Las tomografías computarizadas de la caja craneal han demostrado que la corteza visual ya estaba expandida y que se había establecido una disposición de los canales semicirculares similar a la de las aves modernas.
Espécimen de Berlín (MB.Av.101 / HMN 1880/81)
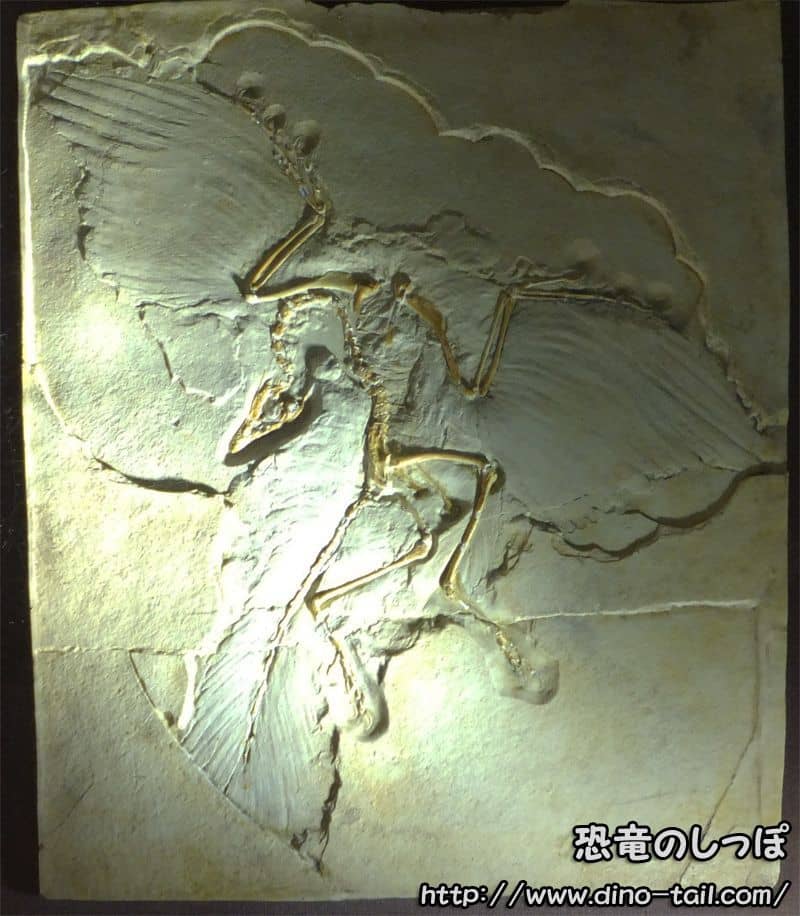
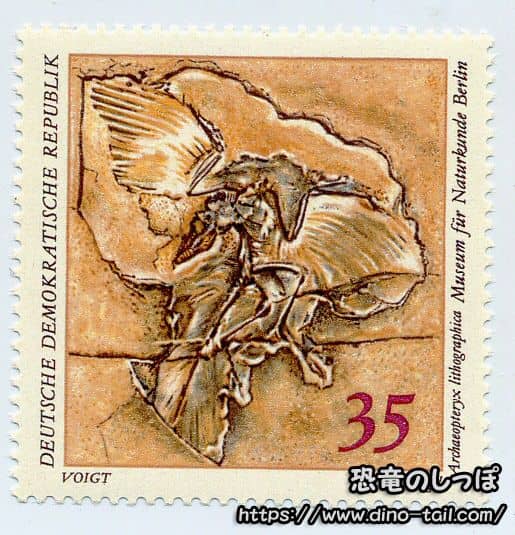
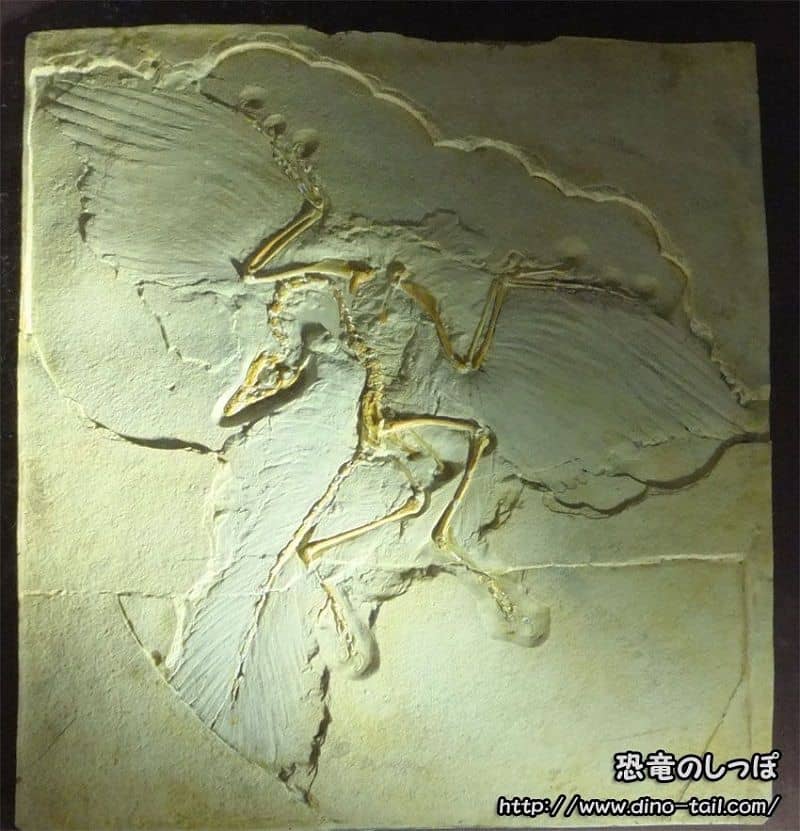
Descubierto entre 1874 y 1876, es el esqueleto articulado más famoso y bellamente completo. El cráneo, con 12 dientes alineados a un lado de la mandíbula superior, y las impresiones de plumas en ambas alas y cola, se conservan vívidamente, mostrando la postura de "opistótonos" con el cuello fuertemente arqueado hacia atrás. Debido a que la forma de los dientes (teniendo una ligera cintura en el medio y curvándose hacia atrás en la punta), las proporciones de las extremidades y la forma de la coracoides difieren del espécimen de Londres, se reconoce ampliamente como la especie independiente Archaeopteryx siemensii.
Espécimen de Solnhofen (BSP 1999 / BMMS 500)
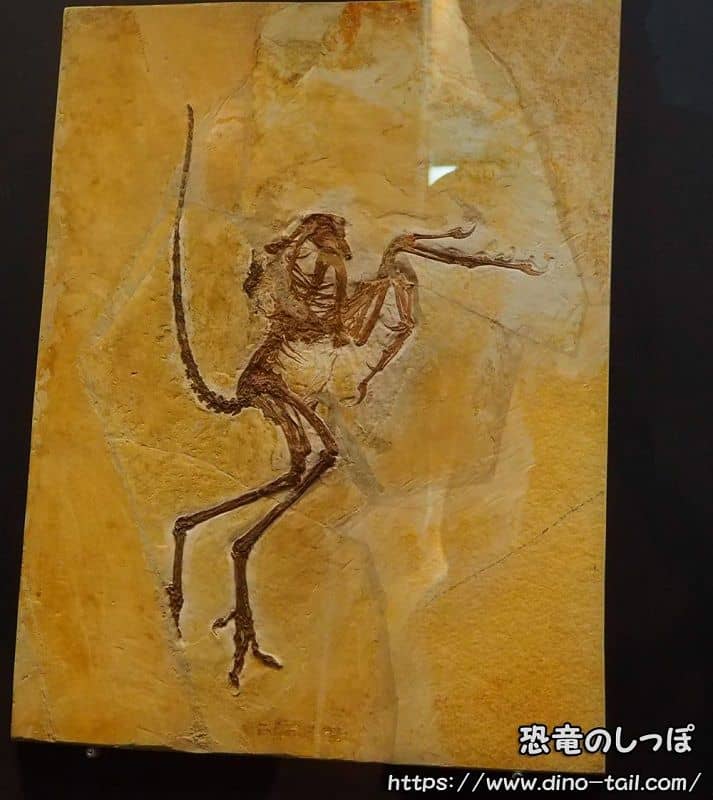
Descubierto en la década de 1970 y descrito en 1988, este es uno de los especímenes óseos más grandes, alcanzando unos 50 centímetros de longitud total. Sobre la base de rasgos como la tendencia a que se fusionen los extremos proximales de los metatarsianos y la reducción de las falanges del cuarto dedo de los cinco habituales a cuatro, en 2001 se presentó una teoría que proponía que era un género y especie distintos, Wellnhoferia grandis. Sin embargo, muchos investigadores lo consideran un individuo grande y maduro de A. lithographica o una especie diferente dentro del mismo género.
Espécimen de Eichstätt (JM 2257)
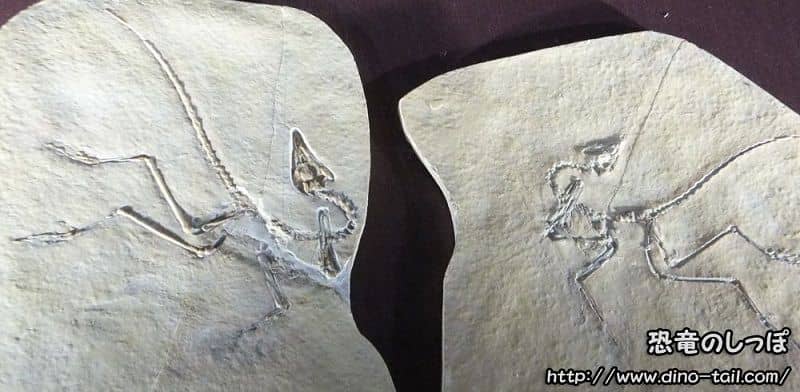
Descubierto en 1951 y descrito en 1974, este fue el individuo más pequeño hasta que apareció el espécimen de Chicago. Aunque las impresiones de las plumas son débiles, el cráneo, la dentición y el esqueleto de las extremidades se conservan en un excelente estado articulado.
Espécimen de Daiting (8vo), Espécimen de Mühlheim, Espécimen de Karlsruhe (13vo)
Estos tres especímenes son grupos de fósiles significativos que provienen de la "Formación Mörnsheim", que es más joven que la piedra caliza típica de Solnhofen (Formación Altmühltal). Debido a que el espécimen de Daiting muestra una fusión avanzada del cráneo y un ahuecamiento interno (neumatización), junto con inserciones musculares de las extremidades anteriores desarrolladas, fue nombrado como una nueva especie más evolucionada, Archaeopteryx albersdoerferi. El espécimen de Mühlheim, descubierto en 2017, es el avialano jurásico más grande con una longitud de húmero que alcanza unos 9 centímetros (111% del espécimen de Solnhofen). Equipado con procesos para la unión de enormes músculos del pecho y los brazos, fue descrito como un nuevo género y especie distinto, Alcmonavis poeschli, más cercano a las aves modernas que al Archaeopteryx. Mientras tanto, el espécimen de Karlsruhe descrito en 2024-2025 indica que el género Archaeopteryx también coexistió en la misma Formación Mörnsheim.
Espécimen de Chicago (FMNH PA 830)
Descubierto antes de 1990 y revelado al público en 2024 en el Museo Field de Historia Natural en Chicago, EE. UU., este es el decimocuarto espécimen esquelético más nuevo. A pesar de ser el más pequeño de todos los especímenes conocidos (longitud del húmero 96% del espécimen de Eichstätt), todos los huesos, excepto una punta (ungueal) del segundo dedo izquierdo, se conservan casi sin aplastar en articulación 3D. Además, debido a que llegó al museo antes de someterse a una preparación comercial brusca, preparadores expertos como Akiko Shinya pasaron más de un año realizando una preparación meticulosa utilizando datos de CT de alta resolución combinados con luces ultravioleta. Como resultado, se realizaron descubrimientos históricos continuos que desentrañan la ecología y evolución del Archaeopteryx, que incluyen una columna vertebral completa de 24 vértebras caudales, las "plumas terciarias" que permitieron el vuelo, e incluso "papilas orales", "huesos hioides", el "órgano de la punta del pico" y almohadillas en la piel y los pies en las extremidades.
Galería de sellos y fósiles de Archaeopteryx