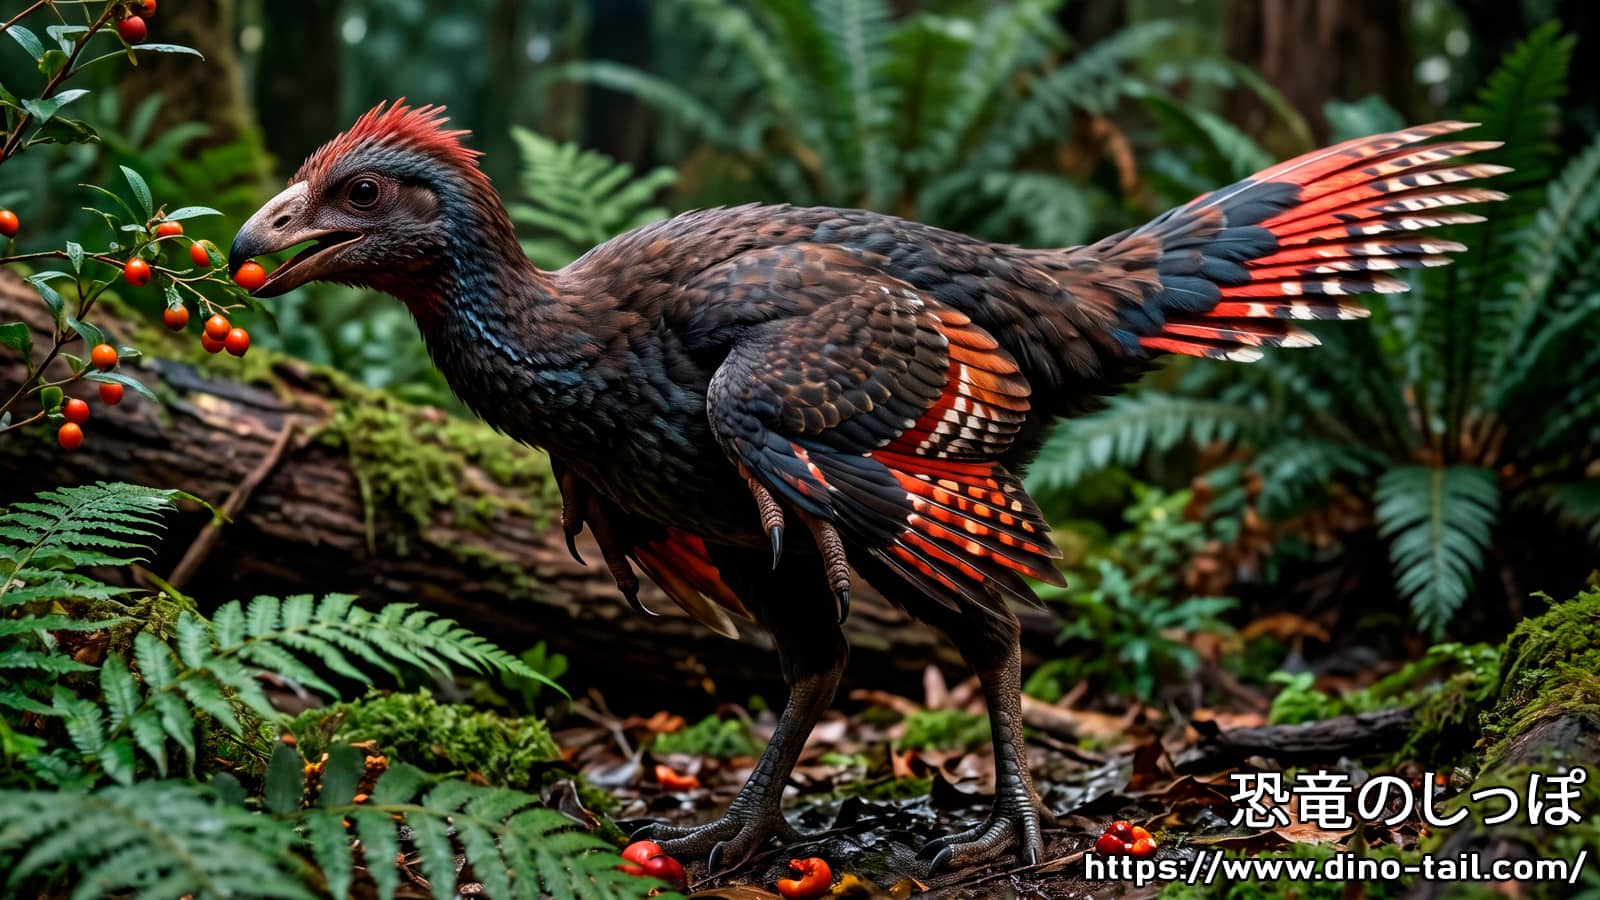
白亜紀最末期の北アメリカ大陸から、恐竜の食性と植物の進化について画期的な知見をもたらした新属新種の恐竜「インフェルノガルス・ジェイムジ(Infernogallus jamesi)」が発見されました。
「地獄のニワトリ(Hell chicken)」という異名を持つこのシチメンチョウ大のオヴィラプトロサウルス類は、恐竜が「果実(フルーツ)」を食べるために特別な進化を遂げていたことを示す、以下のような驚くべき証拠をもたらしています。
- 100年越しの歴史的発見: カエナグナトゥス科の研究史上初となる、ほぼ完全に関節した頭蓋骨と下顎の化石を確認
- 独自の「前後スライド」咀嚼: 現生の特殊なインコのように下顎を前後に滑らせ、果肉をすり潰して種から剥がし取る精巧な顎の仕組みを解明
- 果実との共進化と絶滅の謎: 被子植物の果実の多様化とともに繁栄したものの、小惑星衝突による「衝突の冬」では果実への特化が仇となり絶滅した可能性
本ページでは、最新鋭のCTスキャンと3次元運動モデルによって解き明かされたインフェルノガルスの頭蓋骨の秘密や、果実食をめぐる最新の古生態学的議論について分かりやすく解説します。
研究の背景と新属新種「インフェルノガルス・ジェイムジ」の発見
Gemini Generated Image
白亜紀という時代は、花を咲かせて実を結ぶ「被子植物」が爆発的に広がり、それと並行して植物食恐竜が大きく多様化した時代として知られています。しかし意外なことに、鳥類以外の恐竜が被子植物の「柔らかい果肉を持つ果実(フルーツ)」を食べるために体の構造を直接進化させたという決定的な証拠は、これまで一つも見つかっていませんでした。
この古生物学上の大きな空白を埋めたのが、ストーニーブルック大学のグレゴリー・ファンストン博士やロイヤル・オンタリオ博物館(ROM)、ノースダコタ州地質調査所の研究チーム(クリント・ボイド博士、フィリップ・カリー博士、デイヴィッド・エヴァンス博士ら)です。研究チームは2026年10月10日付の学術誌『Nature Communications』において、北米の白亜紀最末期(マーストリヒチアン期後期:約6,800万〜6,600万年前)の地層であるヘル・クリーク層から発見された5点の化石標本に基づき、オヴィラプトロサウルス類カエナグナトゥス科(真カエナグナトゥス亜科)の新属新種「インフェルノガルス・ジェイムジ(Infernogallus jamesi)」を正式に記載しました。
属名の「Infernogallus(インフェルノガルス)」は、ラテン語の「Inferno(地獄)」と「gallus(ニワトリ)」を組み合わせた言葉で、化石が見つかったヘル・クリーク(地獄の谷)層と、シチメンチョウほどの大きさの鳥に似た体型から「地獄のニワトリ(Hell chicken)」という意味が込められています。また、種小名の「jamesi(ジェイムジ)」は、共著者であるクリント・ボイド博士に古生物学への道を開くきっかけを与えた祖父、ジェームズ・ウィリアム・ボイド氏に献名されたものです。
100年以上の研究史で初となる「完全に近い頭蓋骨」
インフェルノガルスが属するカエナグナトゥス科は、歯のないクチバシ状の下顎、細長く華奢な手足、そして鳥のように空気の袋(気嚢)が入り込んで軽量化された骨を持つ獣脚類のグループです。骨が非常に薄く壊れやすいため、化石になる過程でバラバラに砕け散ってしまうことが多く、このグループの研究が始まってから100年以上もの間、骨が本来の位置で繋がった(関節した)完全に近い頭蓋骨は発見されていませんでした。
しかし、2011年7月にアメリカ・モンタナ州ガーフィールド郡で発掘され、現在ロイヤル・オンタリオ博物館に所蔵・展示されているホロタイプ標本(基準標本:ROM VP 65050)は、カエナグナトゥス科として史上初となる「ほぼ完全に関節した頭蓋骨と下顎」を残していたのです。さらに首から背中にかけての背骨の連なり、腹肋骨、右側の肩と前肢、骨盤の一部、右後肢の一部までが揃った、奇跡的な保存状態の部分骨格でした。
大型種の子どもではなく「小型に進化したおとな」
インフェルノガルスの全長は約1.5メートル、推定体重は約12キログラム(9〜15キログラム)で、カエナグナトゥス科の中では最小クラスの体格です。同じヘル・クリーク層には、体重約300キログラムに達する大型種のアンズー(Anzu wyliei)や、体重約80キログラムの中型種エオネオプロン(Eoneophron infernalis)が生息していたため、この小さな化石が「大型種の子ども(幼体)」ではないかを確認する必要がありました。
骨の断面から年齢を見抜く「骨組織学」と外基礎層(EFS)とは:
恐竜の骨を薄くスライスして偏光顕微鏡で観察すると、木の年輪のように1年ごとの成長の停滞を示す「成長停止線(LAGs)」を確認できます。さらに、成長がほぼ終わったおとな(成体)の骨の最も外側の層には、成長停止線が何重にも密に重なり合った「外基礎層(EFS:External Fundamental System)」と呼ばれる構造が形成されます。インフェルノガルスの大腿骨(太ももの骨)からは複数の成長停止線とともにこの外基礎層がはっきりと確認され、死亡時に少なくとも6〜7歳に達した「おとなの個体」であったことが証明されました。
| 項目 | 詳細データおよび標本・解剖学的情報 |
|---|---|
| 学名(分類群) | Infernogallus jamesi Funston et al., 2026(獣脚類・オヴィラプトロサウルス類・カエナグナトゥス科・真カエナグナトゥス亜科) |
| 学名の意味 | 属名:ラテン語の Inferno(地獄)+ gallus(ニワトリ)。種小名:James William Boyd氏への献名 |
| 産出地層・年代 | アメリカ合衆国 ヘル・クリーク層(白亜紀後期マーストリヒチアン期後期:約6,800万〜6,600万年前) |
| 産出地域 | モンタナ州ガーフィールド郡、サウスダコタ州ミード郡、ノースダコタ州ボウマン郡 |
| ホロタイプ標本 | ROM VP 65050:ほぼ完全な関節頭蓋骨・下顎骨、頸椎・胴椎列、腹肋骨、右肩帯・前肢、骨盤の一部、右後肢 |
| パラタイプ標本(4点) | ROM VP 64193(癒合した左右の歯骨)、ROM VP 64194(左顎関節周辺の複合骨)、ROM VP 88690(左右の翼状骨)、NDGS 4351(癒合した歯骨) |
| 推定体サイズ | 全長:約1.5 m / 大腿骨長:18.5 cm / 推定体重:約12 kg(範囲 9〜15 kg) |
| 骨組織学による年齢 | 大腿骨の断面から複数の成長停止線(LAGs)と外基礎層(EFS)を確認。死亡時6〜7歳以上の成熟した成体 |
| 後肢の固有の特徴 | 大腿骨の筋肉付着部(副転子稜)が発達し、すねの骨(脛骨)の上部にある突起(脛骨稜)が短く強く突き出している |
頭蓋骨・口蓋・下顎の特異な構造と機能
発見された頭蓋骨は地層の中で左右から押しつぶされる変形を受けていたため、研究チームは高解像度のマイクロCTスキャンを用いて骨を一つずつデジタルデータとして切り出し、変形していない他の標本(パラタイプ標本)の立体データを参考にしながら、元の立体的な頭蓋骨の姿をコンピュータ上で精密に復元(レトロデフォーメーション)しました。その結果、これまでの獣脚類の常識を覆す頭蓋骨の構造が浮かび上がりました。
1. 巨大な眼と極端に縮小した側頭部の窓
頭蓋骨の側面で最も目を引くのは、丸い眼窩(眼球が入るくぼみ)が頭蓋骨の底面長の約40%を占めるほど巨大化している一方で、その後ろにある「下側頭窓(かそくとうそう)」という隙間が極端に小さくなっている点です。
アジアに生息していた近縁のオヴィラプトル科(キティパティなど)では、下側頭窓が頭蓋骨の長さの29%、高さの48%を占めており、その周囲に顎を上下に強く閉じるための筋肉(側頭内転筋群)がびっしりと張り付いていました。ところがインフェルノガルスでは、下側頭窓が頭蓋骨の長さのわずか11%、高さの12.5%にまで縮小し、さらに頭蓋骨後上部にある鱗状骨(りんじょうこつ)からは筋肉が付着するためのくぼみや出っ張りが完全に消えていたのです。代わりに、目の下を支える頬骨(きょうこつ)が幅広い板状になって後方の鱗状骨と直接繋がり、耳の穴(外耳道)の周囲を大きな円盤状の骨(方形頬骨)が囲むという独自の補強構造を持っていました。
2. 口の天井(口蓋)の巨大化と筋肉の強化
頭蓋骨の後部にある「顎を上下に噛み合わせる筋肉」が縮小した代わりに、大きく発達していたのが口の天井(口蓋:こうがい)の骨と筋肉でした。
上顎の骨と口の天井の骨が合わさった「上顎鋤骨突起(じょうがくじょこつとっき)」が口の中へ向かって大きく突き出しており、さらにその奥にある「翼状骨(よくじょうこつ)」が横方向に広い棚のように張り出していました。この翼状骨の棚には、顎を前後に動かす役割を持つ「翼突筋群(よくとつきんぐん)」という巨大な筋肉が収まるための深いくぼみと強固な土台が備わっていました。
3. すり鉢状のクチバシと強力な舌、スライドする顎関節
左右が完全に合体(癒合)した歯のない下顎は、先端がインコやカメのように上向きに反り上がったクチバシを形作っています。その噛み合わせ面には複雑な隆起(出っ張り)と溝が並び、中央の深い溝には、口を閉じた際に天井から突き出た上顎鋤骨突起がぴったりと噛み合う構造になっていました。
また、下顎の内側の底面には、舌を動かす筋肉(オトガイ舌筋)が付着していた明瞭なW字型の跡が刻まれており、口の中で食べ物を器用に操るための肉厚で力強い舌を持っていたことが分かりました。そして顎の関節(方形骨と関節骨の繋ぎ目)は、鞍(くら)のような形のくぼみに丸みを帯びたレール状の隆起がはまり込む構造になっており、下顎全体を前後に大きくスライドさせることができたのです。
筋肉の配置転換と「前後スライド」による咀嚼メカニズム
研究チームは、インフェルノガルスの頭蓋骨の立体モデルに顎の筋肉を復元し、ティラノサウルスやアロサウルス、ドロマエオサウルス、テリジノサウルス類(エルリコサウルス)、オヴィラプトル科(キティパティ)、そして現生の鳥類と比較する統計解析を実施しました。
その結果、肉食恐竜や一般的なオヴィラプトル科を含むほぼすべての獣脚類が「顎を上下(垂直方向)に強く閉じる力」に特化していたのに対し、インフェルノガルスは、発達した翼突筋群によって「顎を前後(水平方向)に動かす力」を高めていたことが明らかになりました。
プロパリナル運動(前後スライド咀嚼)の4つのステップ:
3次元運動モデルによって復元されたインフェルノガルスの食べ方(プロパリナル運動)は、次の4つの段階が連動して行われました。
第1段階(口を開く):頭の後部から下顎の後端へ繋がる筋肉(下顎下制筋)が縮み、下顎を下げて口を開きます。
第2段階(下顎を前へ突き出す):口を開いた状態で、口の天井にある強大な翼突筋群が縮み、レール状の顎関節に沿って下顎全体を前方へとスライドさせます。
第3段階(引く角度の変化):下顎が前へ移動することで、頭蓋骨の上部から繋がる筋肉(側頭内転筋群)の角度が斜め後ろ方向へと傾きます。
第4段階(引き戻しとすり潰し):前に出た下顎を斜め後ろ上方へと引き戻します。このスライド運動によって、下顎のギザギザした隆起・溝と、口の天井から垂れ下がる突起との間で食べ物が挟み込まれ、力強い舌の助けを借りながらすり潰されたのです。
現生の「果実食インコ」とそっくりな収斂進化
この顎の筋肉と動きの変化を現生の鳥類と比較すると、驚くべき共通点(収斂進化)が見つかりました。箱のように背が高いオヴィラプトル科の頭蓋骨から、細長く前後スライドに特化したインフェルノガルスの頭蓋骨への変化は、現生のオウム・インコ類において、硬い木の実や種を噛み砕く一般的なヨウムなどから、果物だけを食べるニューギニア産の「アラゲインコ(別名:ドラキュラインコ、学名:Psittrichas fulgidus)」へと進化した道筋と一致していたのです。
アラゲインコはイチジクなどの柔らかい果実を専門に食べ、硬い種を噛み砕くのではなく、口の中で果肉だけをすり潰して種から剥がし取る「果肉除去(ディフレッシング)」という食べ方をします。さらに研究チームは、消去法によって他の食べ物の可能性も検証しました。
- 硬い木の実・種子や肉食ではない理由:上下方向に噛む力が非常に弱いため、硬い種子や殻を割り砕いたり、獲物の肉や骨を噛み切ったりするのには向きません。
- 硬い葉やシダ類が主食ではない理由:繊維質の硬い葉を消化するには、歯で細かく噛み砕くか、石を飲み込んで胃の中で擦り潰す「胃石(いせき)」を持つか、あるいは植物を発酵させるための長い腸(大きなお腹)が必要です。しかし、インフェルノガルスには歯も胃石も全くなく、胴体も短くコンパクトで長い腸を収めるスペースがありませんでした。
これらすべての条件を満たす食べ物こそ、「弱い力でも潰せるほど柔らかく、胃石や長い腸がなくても消化しやすい栄養豊富な食べ物でありながら、飲み込む前に口の中で硬い種(核)から果肉を剥がし取る作業が必要なもの」、すなわちモモやサクランボのように硬い種(核)の周りに柔らかい果肉がついた被子植物の「核果(かくか:ドループ)」だったのです。
| 比較項目 | インフェルノガルス(Infernogallus jamesi) | オヴィラプトル科(例:キティパティ) | テリジノサウルス科(例:エルリコサウルス) | 現生アラゲインコ(Psittrichas fulgidus) |
|---|---|---|---|---|
| 頭蓋骨・下顎の形 | 巨大な眼窩・極小の下側頭窓、低く長い歯のないクチバシ | 上下に高い箱型の頭蓋骨、大きな下側頭窓、短く深い顎 | 細長い頭蓋骨、先端のクチバシと多数の小さな葉状の歯 | 一般的なインコより低く細長い頭蓋骨と鉤状のクチバシ |
| 主な筋肉の働く方向 | 翼突筋群による前後方向の力が卓越 | 側頭内転筋群による上下方向の力が卓越 | 上下方向を中心とした比較的弱い噛み合わせ | 翼突筋群の発達による前後方向の力の増大 |
| 顎の動きと食べ方 | レール状の関節による大幅な前後スライド運動 | 主に上下方向の強力な押し潰し・切り裂き運動 | 上下方向の単純な植物の摘み取り運動 | クチバシの可動性と下顎の前後スライドによる果肉処理 |
| 上下に噛む力 | 低い(柔らかい組織のすり潰し・剥離に特化) | 高い(硬い木の実・種子・乾燥植物の破砕に適応) | 低い(柔らかい葉の摘み取りに特化) | 一般的な種子食のインコ類より低い |
| 胃石と胴体の大きさ | 胃石なし・短い胴体(長い発酵用の腸を持たない) | 胃石なし(強力な口の中での破砕に依存) | 巨大な骨盤と腹腔(長い発酵用の腸を保持) | 砂嚢で種を砕かず、柔らかい果肉を素早く消化 |
| 推定される主な食性 | 果実食(果肉除去)および軟らかい植物食 | 硬い植物・木の実・種子・雑食 | 柔らかい葉・枝葉食(ブラウザー) | 専門的な果実食(果肉をすり潰し種を捨てる) |
被子植物の果実多様化との共進化とK-Pg境界絶滅のパラドックス
研究チームが進化の枝分かれの年代を計算する統計モデル(ベイズ系統解析)を用いてカエナグナトゥス科の進化の歴史を調べたところ、被子植物の果実の進化とタイミングが一致していることが判明しました。
カエナグナトゥス科が誕生したのは白亜紀前期のアプチアン期〜アルビアン期(約1億1,800万〜1億700万年前)と推定されますが、これは地球上に最初の「核果(柔らかい果肉を持つ果実)」の化石が現れたわずか300万〜1,000万年後のことでした。実際に、この時代の北米に生息していた最も原始的なカエナグナトゥス科であるミクロヴェナトル(Microvenator celer)の化石を調べると、すでにインフェルノガルスに似た翼状骨の特徴が備わっていました。
さらに白亜紀後期のサントニアン期後期からカンパニアン期初期(約8,500万〜8,000万年前頃)になると、北半球(ローラシア大陸)全体で果実の種類が増え、サイズが大型化しました。これと全く同じ時期に、複雑な噛み合わせの隆起と高度な前後スライド機構を持つ「真カエナグナトゥス亜科(インフェルノガルスやアンズーなどが属するグループ)」が出現し、急速に多様化していたのです。なお、インフェルノガルスは大きな種(核)を持つ果実については果肉だけを剥がして種を吐き捨てていたと考えられるため、小さな種を持つベリー類を食べたときには種を遠くへ運ぶ「種子散布者」になり、大きな果実に対しては純粋な「果肉の消費者」として関わっていたと推測されています。
ヘル・クリーク生態系における3種の「棲み分け」
今回の発見により、小惑星が衝突する直前の北米ヘル・クリーク層には、体重約12キログラムの小型種インフェルノガルス、体重約80キログラムの中型種エオネオプロン、そして体重約300キログラムの大型種アンズーという、体格がはっきりと異なる少なくとも3種のカエナグナトゥス科が同じ環境で共存していたことがわかりました。体の大きさによって食べる植物の高さや果実・植物の種類を使い分ける「生態的地位(ニッチ)の分割」が行われていたことは、最期の瞬間まで恐竜が豊かな多様性を保っていたことを強く裏付けています。
| 分類群(学名) | 産出地層・年代・地域 | 進化段階・分類 | 推定体重 | 解剖学的・古生態学的な意義 |
|---|---|---|---|---|
| ミクロヴェナトル (Microvenator celer) |
クローバリー層(白亜紀前期:約1億1,800万〜1億700万年前、北米) | 最基盤カエナグナトゥス科 | 小型 | 初期の核果の出現直後に分岐し、すでにインフェルノガルスに似た翼状骨の初期適応を備えていた。 |
| キロステノテス (Chirostenotes pergracilis) |
ダイナソー・パーク層(白亜紀後期カンパニアン期、カナダ) | 真カエナグナトゥス亜科 | 約50 kg | 果実の多様化以降に繁栄した中型種。丸みを帯びた顎先の形がインフェルノガルスによく似ている。 |
| カエナグナトゥス (Caenagnathus collinsi) |
ダイナソー・パーク層(白亜紀後期カンパニアン期、カナダ) | 真カエナグナトゥス亜科 | 約100 kg | キロステノテスと同じ地域に生息し、下顎の形の違いによって食べ物の棲み分けを行っていた大型種。 |
| ギガントラプトル (Gigantoraptor erlianensis) |
二連浩特層(白亜紀後期、中国・内モンゴル自治区) | 基盤的カエナグナトゥス科 | 約1,500〜1,800 kg超 | グループ最大種。カエナグナトゥス科の顎の仕組みが100倍以上の体格差を超えて機能したことを示す。 |
| インフェルノガルス (Infernogallus jamesi) |
ヘル・クリーク層(白亜紀最末期:約6,800万〜6,600万年前、米国) | 真カエナグナトゥス亜科 | 約12 kg(9〜15 kg) | グループ最小級の成体。史上初のほぼ完全な頭蓋骨を保存し、前後スライド咀嚼による果肉処理を実証。 |
| エオネオプロン (Eoneophron infernalis) |
ヘル・クリーク層(白亜紀最末期:約6,800万〜6,600万年前、米国) | 真カエナグナトゥス亜科 | 約78〜80 kg | ヘル・クリークの生態系において、インフェルノガルスやアンズーと共存していた中型種。 |
| アンズー (Anzu wyliei) |
ヘル・クリーク層(白亜紀最末期:約6,800万〜6,600万年前、米国) | 真カエナグナトゥス亜科 | 約202〜342 kg(約300 kg) | ヘル・クリーク生態系における最大級のカエナグナトゥス科。小型・中型種と明確なサイズ差を形成。 |
なぜ生き残れなかったのか? 6,600万年前の絶滅のパラドックス

インフェルノガルスの発見は、6,600万年前の小惑星衝突(K-Pg境界)における「生き残りの条件」にも重要な一石を投じています。これまで、大量絶滅を生き延びた現生鳥類の共通点としては、「体が小さいこと」「鳥のような高い代謝と成長速度を持つこと」「歯のないクチバシを持つこと」「肉食ではないこと」が挙げられてきました。インフェルノガルスはこれらすべての条件を満たしていたにもかかわらず、絶滅してしまいました。
「衝突の冬」とシードバンク(埋土種子)が生死を分けた理由:
小惑星衝突によって大量の塵(ちり)が空を覆い、太陽光が遮られた「衝突の冬(インパクト・ウィンター)」では、植物の光合成がストップし、世界中の森が枯れ果てました。この極限状態のなか、地面の土の中に埋もれて何年も眠り続ける硬い種(シードバンク)を掘り起こして割って食べることができた「種子食の鳥類」は、植物が育たない暗黒の期間も生き延びることができました。一方、季節ごとに実る新鮮で柔らかい「生の果実」に特化していたインフェルノガルスたちは、森が崩壊して実がならなくなった瞬間に食べ物を完全に失ってしまったのです。
つまり、白亜紀後期に被子植物の広がりというチャンスを掴んで繁栄をもたらした「果実食への特化」そのものが、大災害のときには逃げ場のない罠(進化的トラップ)となってしまったとファンストン博士らは結論づけています。
果実食特化仮説に対する批判的検討と総合的な解釈
ファンストン博士らによる「果実食恐竜」という発表は大きな反響を呼びましたが、同時に古生態学や当時の植物・気候の観点からは慎重な反論も提起されています。イギリスのバース大学の古生物学者ニック・ロングリッチ博士らは、カエナグナトゥス科の主食を「果実」とすることに対して、主に次の4つの疑問を投げかけています。
- 体の大きさと巨大種との共通性(アロメトリー):現代の果実を食べる鳥(オオハシやアラゲインコなど)やコウモリのほとんどは体重1キログラム未満です。12キログラムのインフェルノガルスはすでにそれらより大きく、さらに全く同じ構造の下顎を持つアンズー(約300キログラム)やギガントラプトル(1.5トン以上)のような巨体を、小さな果実だけで養うことは不可能です。100倍以上の体重差がある仲間がみんな同じ顎を持っていたのは、どの体格でも成立する一般的な「植物食(葉、茎、新芽、根などの摂取)」だったからではないかという指摘です。
- 木に登れない地上性の体型:果実の多くは木の上の枝先(樹冠)に実るため、現代の果実食動物は空を飛ぶ鳥・コウモリか、木登りが得意なサルや有袋類です(実際にヘル・クリーク層からも、木登りが得意で果実食向きの歯を持つ小型の有袋類グラスビウス Glasbius が見つかっています)。一方、短い前肢と走るための長い後肢を持つインフェルノガルスは完全に地上を歩く恐竜であり、細い枝先まで登って果実を採ることはできませんでした。
- 冬の寒さと当時の森林の植物:インフェルノガルスや近縁種が暮らしていた北米やモンゴルの産地は、当時としては比較的北寄りの緯度(北緯41〜52度付近)にあり、一年中フルーツが実る熱帯雨林ではなく、植物が枯れる寒い冬がある温帯〜亜寒帯の気候でした。さらに当時の森はメタセコイアやマツなどの針葉樹や、風で種を飛ばすスズカケノキの仲間が中心であり、冬の間も果実だけで生き延びるのは難しかったと考えられます。
- 胃石がないことの別の解釈:トリケラトプスなどの角竜類やハドロサウルス類(カモノハシ竜)も、胃石を持たずに植物を食べていました。それは口の中で植物を徹底的にすり潰していたからです。インフェルノガルスの顎も、果実だけでなく、リクガメや植物食のカモ類のように「柔らかい水生植物や若葉、新芽、地下茎(芋のような根)」を口の中で細かくすり潰すために使われていたと解釈することができます。
| 評価のポイント | 果実食特化仮説(Funston et al., 2026 の主張) | 一般・選択的植物食仮説(Longrich, 2026 らの批判的見解) |
|---|---|---|
| 顎の筋肉と動き | 翼突筋の発達による前後スライド運動と低い噛む力は、アラゲインコの「果肉除去」の仕組みと完全に一致する。 | 上顎が動く関節はなく、隆起と前後スライドはリクガメ類や植物食のカモ類が葉や茎・根をすり潰す仕組みに近い。 |
| 胃石がない理由 | 胃石がなく胴体も短いため、繊維質の葉ではなく、消化しやすく栄養価の高い柔らかい果実が不可欠だった。 | 角竜類やハドロサウルス類も胃石を持たない。口の中で細かくすり潰すことで胃石の役割を補っていた。 |
| 体の大きさ(体格差) | インフェルノガルスは約12 kgと小型であり、小型〜中型の果実食の地位に適している。 | 同じ顎を持つアンズー(300 kg)やギガントラプトル(1.5 t)の巨体を果実食では説明できない。 |
| 移動と採食の場所 | 長い脚で森の地面を広く歩き回り、低い木の実や地面に落ちた果実を探して食べていた。 | 地上性で木に登れないため、木の上の果実に手が届かない(木登りする小型哺乳類の方が果実食に有利)。 |
| 当時の植物と季節 | カエナグナトゥス科の誕生と進化の時期が、被子植物の核果の出現・大型化の時期とピタリと一致する。 | 生息地は針葉樹が多く四季のある環境であり、冬に果実がなくなるため一年中果実に頼るのは不可能。 |
結論:獣脚類が到達した「多機能フードプロセッサー」としての顎
これら両方の視点と最新の頭蓋骨の分析結果を総合すると、インフェルノガルスの本当の姿がより立体的に浮かび上がってきます。
まず間違いなく言えるのは、インフェルノガルスの頭蓋骨によって、鳥類以外の獣脚類が単なる「丸呑み」や「上下に噛み切るだけの動き」から抜け出し、哺乳類や一部の鳥類に匹敵するほど高度な「口の中で食べ物をすり潰す能力(口腔内処理)」を進化させていたことが初めて証明されたという点です。
そして四季のある白亜紀後期の環境を考えると、インフェルノガルスの顎は「一年中フルーツしか食べない偏食の器官」というよりも、「栄養価の高い柔らかい植物組織や果実を自在にすり潰す多機能プロセッサー」として働いていたと考えるのが最も自然です。春から秋にかけて果物が実る季節には、被子植物の甘く栄養豊富な果実(核果やベリー類)やイチョウなどの肉質な種子を積極的に探し出し、前後スライドする顎と舌を使って器用に果肉を剥がして食べていたことでしょう。そして果実がなくなる冬場や針葉樹の森では、同じすり潰し機構を使って、柔らかい若葉や新芽、水生植物、地面の中の塊茎(芋)などを細かくペースト状にすり潰すことで、胃石や長い腸を持たない弱点を克服して冬を乗り切っていたと考えられます。
この「口の中で高度にすり潰す」という優れた仕組みがあったからこそ、カエナグナトゥス科は12キログラムのインフェルノガルスから1.5トンを超えるギガントラプトルまで、さまざまな大きさの植物食・雑食恐竜へと姿を変え、白亜紀の最期の瞬間まで繁栄を続けることができたのです。
引用・参考文献
- Fruit-eating adaptations in a Late Cretaceous oviraptorosaur (Theropoda) - ResearchGate, https://www.researchgate.net/publication/415548160_Fruit-eating_adaptations_in_a_Late_Cretaceous_oviraptorosaur_Theropoda
- Meet The 'Hell Chicken', a Dinosaur With an Extremely Rare Type of Diet - ScienceAlert, https://www.sciencealert.com/meet-the-hell-chicken-a-dinosaur-with-an-extremely-rare-type-of-diet
- This Turkey-Sized "Hell Chicken" Lived Alongside T. rex and Ate Fruit - The Daily Galaxy, https://dailygalaxy.com/2026/11/hell-chicken-first-fruit-eating-dinosaur/
- Small, Chicken-Like Dinosaur May Have Had a Jaw Built for Fruit - Sci.News, https://www.sci.news/paleontology/infernogallus-jamesi-15128.html
- Rare fossil discovery reveals new dinosaur species that were specialized fruit-eaters - EurekAlert!, https://www.eurekalert.org/news-releases/1149430
- Meet the Hell Chicken: New Dinosaur Was Built to Eat Fruit - FossilGuy.com, https://www.fossilguy.com/news/hell-chicken-infernogallus-fruit-eating-dinosaur/index.htm
- Infernogallus jamesi Fossil on Display at Royal Ontario Museum - Everything Dinosaur, https://blog.everythingdinosaur.com/blog/_archives/2026/11/11/infernogallus-jamesi-fossil-on-display-at-royal-ontario-museum.html
- Were Caenagnathid Theropods Fruit-Eaters? Probably not. - Nick Longrich, https://www.nicklongrich.com/blog/were-caenagnathid-theropods-fruit-eaters-probably-not