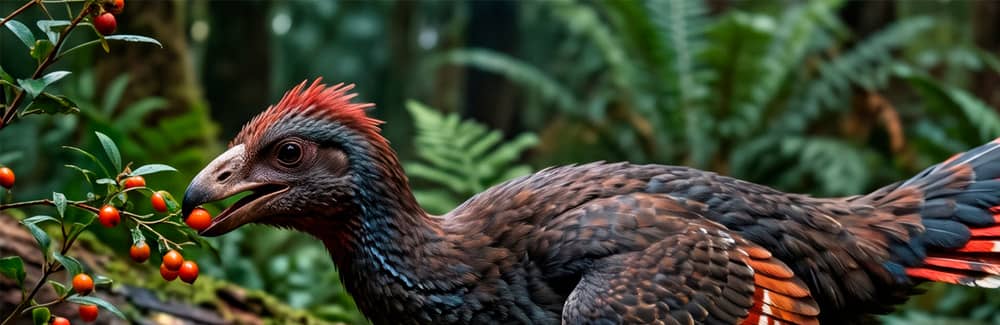
En los estratos del Cretácico más tardío de América del Norte se ha descubierto un nuevo género y especie de dinosaurio, «Infernogallus jamesi», que aporta conocimientos revolucionarios sobre la dieta de los dinosaurios y la evolución de las plantas.
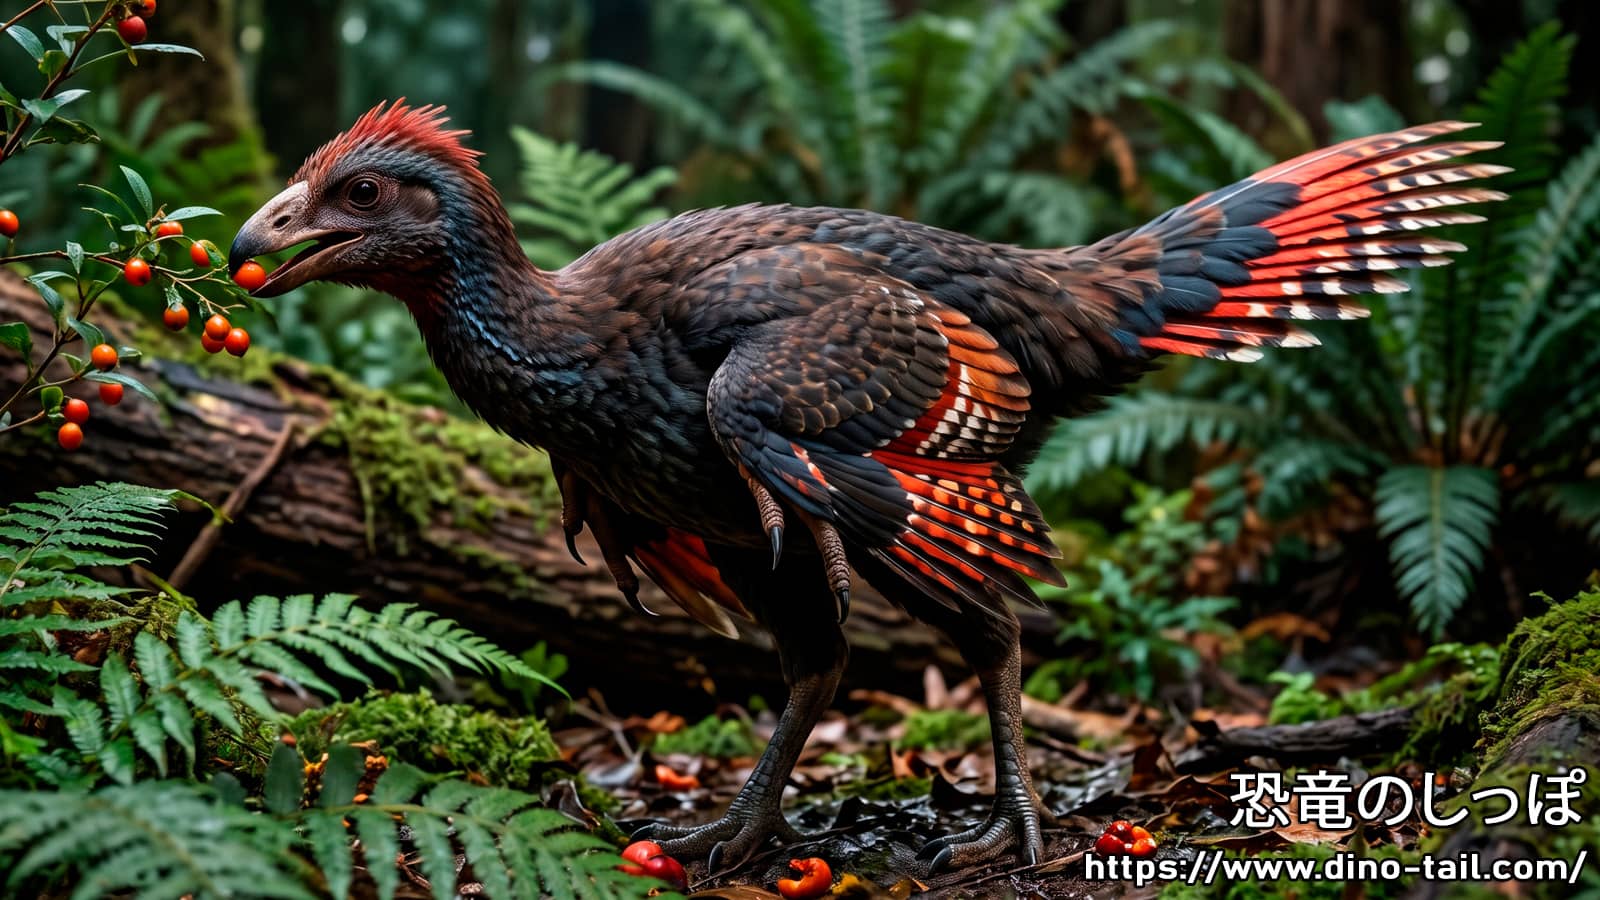
Apodado el «pollo del infierno» (Hell chicken), este oviraptorosaurio del tamaño de un pavo ofrece pruebas asombrosas de que los dinosaurios evolucionaron de manera especial para alimentarse de «frutas»:
- Un hallazgo histórico tras más de 100 años: Confirmación del primer fósil de cráneo y mandíbula inferior casi completamente articulados en toda la historia de estudio de la familia Caenagnathidae.
- Masticación única por «deslizamiento anteroposterior»: Esclarecimiento de un sofisticado mecanismo mandibular que deslizaba la mandíbula inferior hacia adelante y hacia atrás —como ciertos loros actuales— para triturar la pulpa de la fruta y separarla de la semilla.
- Coevolución con las frutas y el misterio de su extinción: Aunque prosperó junto con la diversificación de los frutos de las angiospermas, su especialización en las frutas frescas pudo haber resultado fatal durante el «invierno de impacto» provocado por la caída del asteroide.
En esta página explicamos de manera clara los secretos del cráneo de Infernogallus, revelados mediante tomografías computarizadas (TC) de última generación y modelos cinemáticos tridimensionales, así como los debates paleoecológicos más recientes en torno a la dieta frugívora.
Antecedentes del estudio y el descubrimiento del nuevo género y especie «Infernogallus jamesi»
Gemini Generated Image
El período Cretácico es conocido como una época en la que las «angiospermas» (plantas con flores y frutos) se expandieron de forma explosiva y, en paralelo, los dinosaurios herbívoros se diversificaron enormemente. Sin embargo, resulta sorprendente que hasta ahora no se hubiera encontrado ni una sola prueba concluyente de que los dinosaurios no avianos hubieran evolucionado directamente sus estructuras corporales para alimentarse de «frutos carnosos y blandos» de las angiospermas.
Este gran vacío paleontológico ha sido cubierto por el equipo de investigación liderado por el Dr. Gregory Funston de la Universidad de Stony Brook, junto con investigadores del Museo Real de Ontario (ROM) y del Servicio Geológico de Dakota del Norte (entre ellos el Dr. Clint Boyd, el Dr. Philip Currie y el Dr. David Evans). En un artículo publicado el 10 de octubre de 2026 en la revista científica Nature Communications, el equipo describió oficialmente un nuevo género y especie de oviraptorosaurio de la familia Caenagnathidae (subfamilia Caenagnathinae), «Infernogallus jamesi», basándose en cinco especímenes fósiles hallados en la Formación Hell Creek de América del Norte, perteneciente al final mismo del Cretácico (Maastrichtiense tardío: hace aproximadamente 68 a 66 millones de años).
El nombre genérico «Infernogallus» combina las palabras latinas «Inferno» (infierno) y «gallus» (gallo o pollo), encerrando el significado de «pollo del infierno» (Hell chicken) en referencia tanto a la Formación Hell Creek (Arroyo del Infierno) donde se hallaron los fósiles como a su complexión similar a la de un ave del tamaño de un pavo. Por su parte, el epíteto específico «jamesi» está dedicado a James William Boyd, abuelo del coautor Dr. Clint Boyd, quien le inspiró a adentrarse en el camino de la paleontología.
El primer «cráneo casi completo» en más de 100 años de historia de investigación
La familia Caenagnathidae, a la que pertenece Infernogallus, es un grupo de terópodos caracterizado por poseer una mandíbula inferior desdentada en forma de pico, extremidades largas y esbeltas, y huesos aligerados por sacos de aire (neumatizados) como los de las aves. Dado que sus huesos son sumamente delgados y frágiles, suelen fragmentarse y dispersarse durante el proceso de fosilización; por ello, durante los más de 100 años transcurridos desde que comenzó el estudio de este grupo, nunca se había descubierto un cráneo casi completo con los huesos conectados (articulados) en su posición original.
Sin embargo, el espécimen holotipo (espécimen de referencia: ROM VP 65050), excavado en julio de 2011 en el condado de Garfield, Montana (EE. UU.), y actualmente conservado y expuesto en el Museo Real de Ontario, preservó el primer «cráneo y mandíbula inferior casi completamente articulados» en la historia de los cenagnátidos. Además, se trataba de un esqueleto parcial en un estado de conservación milagroso que incluía una serie conectada de vértebras desde el cuello hasta el dorso, costillas abdominales (gastralia), el hombro y la extremidad anterior derechos, parte de la pelvis y parte de la extremidad posterior derecha.
No era la cría de una especie grande, sino un «adulto que evolucionó hacia un tamaño pequeño»
Con una longitud total de aproximadamente 1,5 metros y un peso estimado de unos 12 kilogramos (entre 9 y 15 kg), Infernogallus se sitúa entre los miembros más pequeños de la familia Caenagnathidae. Dado que en la misma Formación Hell Creek habitaban especies grandes como Anzu wyliei (de unos 300 kg de peso) y especies medianas como Eoneophron infernalis (de unos 80 kg), era necesario comprobar si este pequeño fósil no correspondía simplemente a un «individuo juvenil (cría) de una especie grande».
¿Qué son la «osteohistología» y el Sistema Fundamental Externo (EFS) que revelan la edad a partir del corte transversal del hueso?:
Al cortar láminas muy finas de huesos de dinosaurio y observarlas con un microscopio de luz polarizada, se pueden identificar las «líneas de crecimiento detenido (LAGs)», que marcan las pausas anuales del crecimiento al igual que los anillos de un árbol. Además, en la capa más externa del hueso de los individuos adultos que prácticamente han terminado de crecer, se forma una estructura en la que las líneas de crecimiento detenido se acumulan densamente llamada «Sistema Fundamental Externo (EFS, por sus siglas en inglés: External Fundamental System)». En el fémur (hueso del muslo) de Infernogallus se confirmó claramente este EFS junto con múltiples líneas de crecimiento detenido, demostrando que se trataba de un «individuo adulto» que había alcanzado al menos entre 6 y 7 años de edad al momento de morir.
| Elemento | Datos detallados e información anatómica y de los especímenes |
|---|---|
| Nombre científico (Taxón) | Infernogallus jamesi Funston et al., 2026 (Theropoda, Oviraptorosauria, Caenagnathidae, Caenagnathinae) |
| Significado del nombre | Género: del latín Inferno (infierno) + gallus (pollo/gallo). Especie: dedicado a James William Boyd |
| Formación y edad | Formación Hell Creek, Estados Unidos (Cretácico Superior, Maastrichtiense tardío: hace aprox. 68–66 millones de años) |
| Regiones de hallazgo | Condado de Garfield (Montana), condado de Meade (Dakota del Sur) y condado de Bowman (Dakota del Norte) |
| Espécimen holotipo | ROM VP 65050: cráneo y mandíbula casi completos y articulados, serie vertebral cervical y dorsal, gastralia, cintura escapular y extremidad anterior derechas, pelvis parcial y extremidad posterior derecha |
| Especímenes paratipo (4) | ROM VP 64193 (dentarios izquierdo y derecho fusionados), ROM VP 64194 (hueso compuesto alrededor de la articulación mandibular izquierda), ROM VP 88690 (pterigoides izquierdo y derecho), NDGS 4351 (dentarios fusionados) |
| Tamaño corporal estimado | Longitud total: aprox. 1,5 m / Longitud del fémur: 18,5 cm / Peso estimado: aprox. 12 kg (rango: 9–15 kg) |
| Edad por osteohistología | Múltiples líneas de crecimiento detenido (LAGs) y Sistema Fundamental Externo (EFS) confirmados en sección femoral; adulto maduro de 6 a 7+ años al morir |
| Rasgos propios de la pata trasera | Zona de inserción muscular del fémur (cresta trocantérica accesoria) bien desarrollada y prominencia superior de la tibia (cresta cnemial) corta y fuertemente proyectada |
Estructura y función peculiares del cráneo, el paladar y la mandíbula inferior
Dado que el cráneo descubierto había sufrido una deformación por aplastamiento lateral dentro del estrato rocoso, el equipo de investigación utilizó microtomografía computarizada (micro-TC) de alta resolución para extraer digitalmente cada hueso uno por uno y, tomando como referencia los datos tridimensionales de otros especímenes no deformados (paratipos), reconstruyó con precisión en computadora la forma tridimensional original del cráneo (retrodeformación). Como resultado, salió a la luz una estructura craneal que rompe con todo lo que se conocía hasta ahora en los terópodos.
1. Ojos enormes y una ventana temporal extremadamente reducida
En la vista lateral del cráneo, lo que más llama la atención es que la órbita circular (la cavidad donde se aloja el globo ocular) se ha agrandado hasta ocupar cerca del 40 % de la longitud basal del cráneo, mientras que la abertura situada detrás de ella, llamada «fenestra infratemporal (ventana temporal inferior)», se ha vuelto extremadamente pequeña.
En los oviraptóridos emparentados que habitaban en Asia (como Citipati), la fenestra infratemporal ocupaba el 29 % de la longitud del cráneo y el 48 % de su altura, y alrededor de ella se adherían densamente los músculos encargados de cerrar con fuerza la mandíbula verticalmente (el grupo de músculos aductores temporales). Sin embargo, en Infernogallus, la fenestra infratemporal se redujo a tan solo el 11 % de la longitud craneal y el 12,5 % de su altura; además, del hueso escamoso situado en la parte posterosuperior del cráneo habían desaparecido por completo las depresiones y crestas destinadas a la inserción muscular. En su lugar, el hueso yugal (pómulo) que sostiene la parte inferior del ojo adoptó la forma de una placa ancha conectada directamente con el hueso escamoso posterior, mientras que un gran hueso en forma de disco (el cuadradoyugal) rodeaba la abertura del oído (meato acústico externo) formando una estructura de refuerzo única.
2. Agrandamiento del techo de la boca (paladar) y fortalecimiento muscular
En compensación por la reducción de los «músculos que cierran la mandíbula de arriba abajo» en la parte posterior del cráneo, lo que se desarrolló enormemente fueron los huesos y músculos del techo de la boca (el paladar).
El «proceso maxilovomerino», formado por la unión del hueso maxilar superior y los huesos del paladar, sobresalía de manera prominente hacia el interior de la cavidad bucal, y más atrás el «hueso pterigoides» se proyectaba lateralmente como un amplio estante. Este estante pterigoideo contaba con profundas depresiones y una base sólida para alojar el «grupo muscular pterigoideo», unos músculos gigantescos encargados de mover la mandíbula hacia adelante y hacia atrás.
3. Pico en forma de mortero, lengua poderosa y articulación mandibular deslizante
La mandíbula inferior desdentada, cuyos lados izquierdo y derecho están completamente fusionados, forma en su punta un pico curvado hacia arriba similar al de los loros o las tortugas. Su superficie de oclusión (mordida) presenta un complejo conjunto de crestas y surcos, y en el profundo surco central encajaba a la perfección el proceso maxilovomerino que sobresalía del techo de la boca al cerrar las mandíbulas.
Asimismo, en el suelo interno de la mandíbula inferior había quedado grabada una clara marca en forma de W donde se insertaba el músculo que mueve la lengua (músculo geniogloso), lo que reveló que poseía una lengua carnosa y potente capaz de manipular hábilmente los alimentos dentro de la boca. Por su parte, la articulación mandibular (la unión entre el hueso cuadrado y el hueso articular) tenía una estructura en la que una cresta redondeada en forma de riel encajaba en una cavidad con forma de silla de montar, permitiendo que toda la mandíbula inferior se deslizara ampliamente hacia adelante y hacia atrás.
Reorganización muscular y mecanismo de masticación por «deslizamiento anteroposterior»
El equipo de investigación reconstruyó los músculos mandibulares sobre el modelo tridimensional del cráneo de Infernogallus y llevó a cabo análisis estadísticos comparándolo con Tyrannosaurus, Allosaurus, Dromaeosaurus, terizinosaurios (Erlikosaurus), oviraptóridos (Citipati) y aves actuales.
Como resultado, quedó claro que, mientras casi todos los terópodos —incluidos los dinosaurios carnívoros y los oviraptóridos típicos— estaban especializados en la «fuerza para cerrar con potencia la mandíbula en sentido vertical (de arriba abajo)», Infernogallus había potenciado la «fuerza para mover la mandíbula en sentido anteroposterior (horizontal)» gracias a su desarrollado grupo muscular pterigoideo.
Los 4 pasos del movimiento propalinal (masticación por deslizamiento anteroposterior):
La forma de comer de Infernogallus (movimiento propalinal), reconstruida mediante un modelo cinemático tridimensional, se llevaba a cabo mediante la coordinación de las siguientes cuatro etapas:
Etapa 1 (Abrir la boca): El músculo que conecta la parte posterior de la cabeza con el extremo posterior de la mandíbula inferior (músculo depresor de la mandíbula) se contrae, bajando la mandíbula inferior para abrir la boca.
Etapa 2 (Proyectar la mandíbula inferior hacia adelante): Con la boca abierta, los poderosos músculos pterigoideos situados en el techo de la boca se contraen y deslizan toda la mandíbula inferior hacia adelante a lo largo de la articulación mandibular en forma de riel.
Etapa 3 (Cambio en el ángulo de tracción): Al desplazarse la mandíbula inferior hacia adelante, el ángulo de los músculos que bajan desde la parte superior del cráneo (grupo aductor temporal) se inclina en dirección oblicua hacia atrás.
Etapa 4 (Retracción y trituración): La mandíbula inferior adelantada es tirada oblicuamente hacia atrás y hacia arriba. Mediante este movimiento de deslizamiento, el alimento quedaba atrapado entre las crestas y surcos dentados de la mandíbula inferior y la prominencia que colgaba del techo de la boca, siendo triturado con la ayuda de su potente lengua.
Una evolución convergente idéntica a la de los «loros frugívoros» actuales
Al comparar estos cambios en los músculos y movimientos de la mandíbula con las aves actuales, se descubrió una sorprendente similitud (evolución convergente). La transformación desde el cráneo alto y en forma de caja de los oviraptóridos hasta el cráneo alargado y especializado en el deslizamiento anteroposterior de Infernogallus coincide exactamente con la ruta evolutiva seguida dentro del grupo de los loros y cacatúas actuales, desde loros generales que parten nueces y semillas duras (como el loro gris africano) hasta el «loro aguileño (también llamado loro Drácula, nombre científico: Psittrichas fulgidus)» de Nueva Guinea, que se alimenta exclusivamente de frutas.
El loro aguileño se especializa en comer frutas blandas como los higos y, en lugar de triturar las semillas duras, emplea un método de alimentación llamado «despulpado (deflushing)», que consiste en machacar únicamente la pulpa dentro de la boca para desprenderla de las semillas. Además, el equipo de investigación verificó mediante descarte la posibilidad de otros tipos de alimentos:
- Por qué no era carnívoro ni comedor de nueces o semillas duras: Debido a que su fuerza de mordida en sentido vertical era sumamente débil, no resultaba apto para partir semillas o cáscaras duras ni para desgarrar la carne o los huesos de una presa.
- Por qué las hojas duras y los helechos no eran su alimento principal: Para digerir hojas duras y fibrosas es necesario masticarlas finamente con dientes, tragar piedras («gastrolitos») para molerlas en el estómago, o bien poseer un intestino largo (un gran abdomen) para fermentar las plantas. Sin embargo, Infernogallus carecía por completo tanto de dientes como de gastrolitos, y su tronco era corto y compacto, sin espacio para albergar un intestino largo.
El único alimento que cumple todas estas condiciones —«lo suficientemente blando como para aplastarse con poca fuerza, rico en nutrientes y fácil de digerir sin necesidad de gastrolitos ni de un intestino largo, pero que requiere el trabajo de separar en la boca la pulpa de un hueso o semilla dura antes de tragar»— eran precisamente las «drupas (frutos de hueso)» de las angiospermas, provistas de una pulpa blanda alrededor de una semilla dura (hueso) como los melocotones o las cerezas.
| Elemento de comparación | Infernogallus jamesi | Oviraptoridae (ej.: Citipati) | Therizinosauridae (ej.: Erlikosaurus) | Loro aguileño actual (Psittrichas fulgidus) |
|---|---|---|---|---|
| Forma del cráneo y mandíbula | Órbita enorme, fenestra infratemporal diminuta, pico desdentado bajo y largo | Cráneo alto en forma de caja, gran fenestra infratemporal, mandíbula corta y profunda | Cráneo alargado, pico en la punta y numerosos dientes pequeños en forma de hoja | Cráneo más bajo y alargado que el de un loro común y pico ganchudo |
| Dirección principal de la fuerza muscular | Predominio de la fuerza anteroposterior mediante el grupo muscular pterigoideo | Predominio de la fuerza vertical (de arriba abajo) mediante los aductores temporales | Mordida relativamente débil centrada en la dirección vertical | Aumento de la fuerza anteroposterior por el desarrollo de los músculos pterigoideos |
| Movimiento mandibular y alimentación | Amplio deslizamiento anteroposterior mediante una articulación en forma de riel | Potente movimiento de aplastamiento y corte principalmente vertical | Movimiento vertical simple de recolección de plantas | Movilidad del pico y deslizamiento anteroposterior mandibular para procesar la pulpa |
| Fuerza de mordida vertical | Baja (especializada en triturar y desprender tejidos blandos) | Alta (adaptada para triturar nueces duras, semillas y plantas secas) | Baja (especializada en arrancar hojas blandas) | Más baja que en los loros granívoros comunes |
| Gastrolitos y tamaño del tronco | Sin gastrolitos y tronco corto (carece de un intestino largo para fermentación) | Sin gastrolitos (depende de una potente trituración dentro de la boca) | Pelvis y cavidad abdominal enormes (alberga un largo intestino fermentador) | No tritura semillas en la molleja; digiere rápidamente la pulpa blanda |
| Dieta principal estimada | Frugivoría (despulpado de frutas) y plantas blandas | Plantas duras, nueces, semillas y dieta omnívora | Hojas blandas y brotes (ramoneador) | Frugivoría especializada (tritura la pulpa y desecha las semillas) |
Coevolución con la diversificación de los frutos de las angiospermas y la paradoja de la extinción del límite K-Pg
Cuando el equipo de investigación examinó la historia evolutiva de la familia Caenagnathidae utilizando modelos estadísticos que calculan las fechas de ramificación evolutiva (análisis filogenético bayesiano), descubrió que los tiempos coincidían con la evolución de los frutos de las angiospermas.
Se estima que la familia Caenagnathidae surgió entre el Aptiense y el Albiense del Cretácico Inferior (hace unos 118 a 107 millones de años), tan solo entre 3 y 10 millones de años después de que aparecieran en la Tierra los primeros fósiles de «drupas (frutos con pulpa carnosa y blanda)». De hecho, al examinar los fósiles de Microvenator celer, el cenagnátido más primitivo que habitaba en América del Norte en aquella época, se comprobó que ya contaba con características en el hueso pterigoides similares a las de Infernogallus.
Más adelante, entre finales del Santoniense y principios del Campaniense en el Cretácico Superior (hace unos 85 a 80 millones de años), aumentó la variedad de frutos y su tamaño se hizo mayor en todo el hemisferio norte (el continente de Laurasia). Exactamente en esa misma época apareció y se diversificó rápidamente la «subfamilia Caenagnathinae (el grupo al que pertenecen Infernogallus y Anzu)», dotada de complejas crestas de mordida y un avanzado mecanismo de deslizamiento anteroposterior. Cabe señalar que, dado que se considera que Infernogallus desprendía únicamente la pulpa y escupía las semillas de los frutos con huesos grandes, se deduce que actuaba como «dispersor de semillas» al comer bayas con semillas pequeñas, mientras que frente a los frutos grandes se comportaba como un puro «consumidor de pulpa».
«Reparto de nichos» entre tres especies en el ecosistema de Hell Creek
Gracias a este descubrimiento se ha sabido que, justo antes del impacto del asteroide, en la Formación Hell Creek de Norteamérica convivían en el mismo entorno al menos tres especies de cenagnátidos de complexión claramente diferente: la especie pequeña Infernogallus, de unos 12 kg de peso; la especie mediana Eoneophron, de unos 80 kg; y la especie grande Anzu, de unos 300 kg. El hecho de que existiera una «partición de nichos ecológicos» —repartiéndose la altura de las plantas y el tipo de frutos o vegetales según el tamaño corporal— respalda firmemente la idea de que los dinosaurios mantuvieron una rica diversidad hasta el último instante.
| Taxón (Nombre científico) | Formación, edad y región | Etapa evolutiva / Clasificación | Peso estimado | Importancia anatómica y paleoecológica |
|---|---|---|---|---|
| Microvenator celer | Formación Cloverly (Cretácico Inferior: hace aprox. 118–107 Ma, Norteamérica) | Caenagnathidae más basal | Pequeño | Se ramificó justo después de la aparición de las primeras drupas y ya poseía adaptaciones iniciales en el pterigoides similares a las de Infernogallus. |
| Chirostenotes pergracilis | Formación Dinosaur Park (Cretácico Superior, Campaniense, Canadá) | Caenagnathinae | Aprox. 50 kg | Especie de tamaño mediano que prosperó tras la diversificación de las frutas; la forma redondeada de la punta de su mandíbula se parece mucho a la de Infernogallus. |
| Caenagnathus collinsi | Formación Dinosaur Park (Cretácico Superior, Campaniense, Canadá) | Caenagnathinae | Aprox. 100 kg | Especie grande que habitaba en la misma región que Chirostenotes y se repartía los recursos alimenticios mediante diferencias en la forma de la mandíbula inferior. |
| Gigantoraptor erlianensis | Formación Iren Dabasu (Cretácico Superior, Mongolia Interior, China) | Caenagnathidae basal | Más de 1.500–1.800 kg | La especie más grande del grupo; demuestra que el mecanismo mandibular de los cenagnátidos funcionaba a través de una diferencia de tamaño corporal de más de 100 veces. |
| Infernogallus jamesi | Formación Hell Creek (Cretácico más tardío: hace aprox. 68–66 Ma, EE. UU.) | Caenagnathinae | Aprox. 12 kg (9–15 kg) | Adulto de los más pequeños del grupo; conserva el primer cráneo casi completo de la historia y demuestra el procesamiento de pulpa mediante deslizamiento anteroposterior. |
| Eoneophron infernalis | Formación Hell Creek (Cretácico más tardío: hace aprox. 68–66 Ma, EE. UU.) | Caenagnathinae | Aprox. 78–80 kg | Especie de tamaño mediano que coexistió con Infernogallus y Anzu en el ecosistema de Hell Creek. |
| Anzu wyliei | Formación Hell Creek (Cretácico más tardío: hace aprox. 68–66 Ma, EE. UU.) | Caenagnathinae | Aprox. 202–342 kg (aprox. 300 kg) | El cenagnátido más grande del ecosistema de Hell Creek, marcando una clara diferencia de tamaño con las especies pequeña y mediana. |
¿Por qué no pudo sobrevivir? La paradoja de la extinción de hace 66 millones de años

El descubrimiento de Infernogallus también plantea una cuestión importante sobre las «condiciones para la supervivencia» durante el impacto del asteroide hace 66 millones de años (el límite K-Pg). Hasta ahora, como puntos en común de las aves actuales que sobrevivieron a la extinción masiva se habían señalado «tener un cuerpo pequeño», «poseer un metabolismo alto y una rápida velocidad de crecimiento como las aves», «tener un pico sin dientes» y «no ser carnívoras». A pesar de que Infernogallus cumplía todas y cada una de estas condiciones, terminó extinguiéndose.
Por qué el «invierno de impacto» y los bancos de semillas marcaron la diferencia entre la vida y la muerte:
Durante el «invierno de impacto (impact winter)», en el que enormes cantidades de polvo cubrieron el cielo tras el choque del asteroide y bloquearon la luz solar, la fotosíntesis de las plantas se detuvo y los bosques de todo el mundo se secaron. En medio de esta situación extrema, las «aves granívoras (comedoras de semillas)», capaces de desenterrar, partir y comer las semillas duras que permanecen latentes durante años bajo tierra (el banco de semillas del suelo), lograron sobrevivir incluso durante el período de oscuridad en el que no crecían plantas. En cambio, los dinosaurios como Infernogallus, especializados en las «frutas frescas» y blandas que maduran por estaciones, perdieron por completo su alimento en el instante mismo en que los bosques colapsaron y dejaron de dar frutos.
Es decir, el Dr. Funston y sus colegas concluyen que la propia «especialización en la dieta frugívora», que les había permitido aprovechar la oportunidad de la expansión de las angiospermas y prosperar durante el Cretácico Superior, se convirtió en una trampa sin salida (una trampa evolutiva) en el momento de la gran catástrofe.
Examen crítico de la hipótesis de especialización frugívora e interpretación integral
Aunque el anuncio de un «dinosaurio comedor de frutas» por parte del equipo del Dr. Funston causó una gran repercusión, al mismo tiempo se han planteado objeciones prudentes desde el punto de vista de la paleoecología, la flora y el clima de la época. El paleontólogo Dr. Nick Longrich, de la Universidad de Bath (Reino Unido), y otros investigadores han formulado principalmente las siguientes cuatro dudas respecto a considerar las «frutas» como el alimento principal de los cenagnátidos:
- El tamaño corporal y los rasgos compartidos con las especies gigantes (alometría): La mayoría de las aves actuales que comen frutas (como los tucanes o el loro aguileño) y de los murciélagos frugívoros pesan menos de 1 kilogramo. Con sus 12 kilogramos, Infernogallus ya es más grande que ellos, y resulta imposible alimentar cuerpos gigantescos que poseen exactamente la misma estructura en la mandíbula inferior —como Anzu (unos 300 kg) o Gigantoraptor (más de 1,5 toneladas)— únicamente a base de frutas pequeñas. Se señala que la razón por la que parientes con una diferencia de peso de más de 100 veces compartían la misma mandíbula radica probablemente en que se trataba de un «herbivorismo general (consumo de hojas, tallos, brotes tiernos, raíces, etc.)» válido para cualquier tamaño corporal.
- Complexión terrestre incapaz de trepar a los árboles: Dado que la mayoría de los frutos crecen en las puntas de las ramas altas (el dosel arbóreo), los animales frugívoros actuales son aves o murciélagos que vuelan, o bien monos y marsupiales expertos en trepar a los árboles (de hecho, en la propia Formación Hell Creek se ha encontrado a Glasbius, un pequeño marsupial trepador con dientes adaptados para comer frutas). Por el contrario, Infernogallus, con sus cortas extremidades anteriores y sus largas patas traseras adaptadas para correr, era un dinosaurio estrictamente terrestre que no podía trepar hasta las ramas finas para recolectar frutos.
- El frío invernal y las plantas de los bosques de la época: Los yacimientos de América del Norte y Mongolia donde vivían Infernogallus y sus parientes se encontraban en latitudes relativamente septentrionales para la época (alrededor de los 41° a 52° de latitud norte); no eran selvas tropicales con frutas durante todo el año, sino regiones de clima templado a subártico con inviernos fríos en los que las plantas se secaban. Además, los bosques de entonces estaban dominados por coníferas como Metasequoia y pinos, o por parientes de los plátanos de sombra (Platanaceae) cuyas semillas se dispersan por el viento, por lo que habría sido difícil sobrevivir durante el invierno dependiendo únicamente de las frutas.
- Otra interpretación de la ausencia de gastrolitos: Los ceratopsios (como Triceratops) y los hadrosaurios (dinosaurios pico de pato) también comían plantas sin poseer gastrolitos, debido a que trituraban exhaustivamente los vegetales dentro de la boca. Del mismo modo, se puede interpretar que la mandíbula de Infernogallus se utilizaba no solo para las frutas, sino también —al igual que en las tortugas terrestres o los patos herbívoros— para machacar finamente en la boca «plantas acuáticas blandas, hojas jóvenes, brotes tiernos y tallos subterráneos (raíces parecidas a tubérculos)».
| Punto de evaluación | Hipótesis de especialización frugívora (Postura de Funston et al., 2026) | Hipótesis de herbivorismo general / selectivo (Visión crítica de Longrich, 2026, etc.) |
|---|---|---|
| Músculos y movimiento mandibular | El deslizamiento anteroposterior impulsado por los músculos pterigoideos y la baja fuerza de mordida coinciden plenamente con el mecanismo de «despulpado» del loro aguileño. | No hay articulación móvil en la mandíbula superior; las crestas y el deslizamiento anteroposterior se asemejan más al mecanismo con que las tortugas terrestres y los patos herbívoros trituran hojas, tallos y raíces. |
| Razón de la ausencia de gastrolitos | Al no tener gastrolitos y poseer un tronco corto, le resultaban indispensables los frutos blandos, nutritivos y fáciles de digerir en lugar de las hojas fibrosas. | Los ceratopsios y hadrosaurios tampoco tienen gastrolitos; compensaban la función de las piedras estomacales triturando finamente el alimento dentro de la boca. |
| Tamaño corporal (diferencia de porte) | Infernogallus es pequeño, de unos 12 kg, lo que resulta adecuado para el nicho de un frugívoro de tamaño pequeño a mediano. | La frugivoría no puede explicar los cuerpos gigantescos de Anzu (300 kg) o Gigantoraptor (1,5 t), que poseen la misma mandíbula. |
| Desplazamiento y lugar de forrajeo | Caminaba ampliamente por el suelo del bosque con sus largas patas, buscando y comiendo frutos de arbustos bajos o caídos al suelo. | Al ser terrestre y no poder trepar a los árboles, no alcanzaba las frutas de las copas (los pequeños mamíferos trepadores tenían ventaja para la frugivoría). |
| Flora de la época y estaciones | La época de aparición y evolución de los cenagnátidos coincide exactamente con la aparición y el aumento de tamaño de las drupas de las angiospermas. | El hábitat era un entorno con cuatro estaciones y abundantes coníferas; al desaparecer las frutas en invierno, era imposible depender de ellas todo el año. |
Conclusión: La mandíbula como un «procesador de alimentos multifuncional» alcanzado por los terópodos
Al integrar ambas perspectivas con los resultados de los análisis más recientes del cráneo, la verdadera imagen de Infernogallus emerge con mayor claridad y tridimensionalidad.
En primer lugar, lo que se puede afirmar sin lugar a dudas es que el cráneo de Infernogallus ha demostrado por primera vez que los terópodos no avianos habían superado el simple acto de «tragar entero» o de «morder únicamente de arriba abajo», habiendo evolucionado una avanzada «capacidad para triturar los alimentos dentro de la boca (procesamiento oral)» comparable a la de los mamíferos y ciertas aves.
Asimismo, teniendo en cuenta el entorno con cuatro estaciones del Cretácico Superior, lo más natural es considerar que la mandíbula de Infernogallus no funcionaba como un «órgano de dieta exclusiva que solo comía frutas durante todo el año», sino como un «procesador multifuncional capaz de triturar con soltura tejidos vegetales blandos de alto valor nutritivo y frutas». Desde la primavera hasta el otoño, durante la temporada en que maduraban las frutas, sin duda buscaba activamente los frutos dulces y nutritivos de las angiospermas (drupas y bayas), así como las semillas carnosas de Ginkgo, utilizando hábilmente su mandíbula deslizante y su lengua para desprender y comer la pulpa. Y durante el invierno, cuando escaseaban las frutas, o en los bosques de coníferas, utilizaba ese mismo mecanismo de trituración para machacar hasta convertir en una pasta fina las hojas jóvenes y blandas, los brotes tiernos, las plantas acuáticas y los tubérculos subterráneos, superando así la desventaja de no poseer gastrolitos ni un intestino largo para sobrevivir al invierno.
Precisamente gracias a este excelente sistema de «trituración avanzada dentro de la boca», la familia Caenagnathidae pudo transformarse en dinosaurios herbívoros y omnívoros de los más diversos tamaños —desde el Infernogallus de 12 kilogramos hasta el Gigantoraptor de más de 1,5 toneladas— y continuar prosperando hasta el último instante del período Cretácico.
Citas y referencias bibliográficas
- Fruit-eating adaptations in a Late Cretaceous oviraptorosaur (Theropoda) - ResearchGate, https://www.researchgate.net/publication/415548160_Fruit-eating_adaptations_in_a_Late_Cretaceous_oviraptorosaur_Theropoda
- Meet The 'Hell Chicken', a Dinosaur With an Extremely Rare Type of Diet - ScienceAlert, https://www.sciencealert.com/meet-the-hell-chicken-a-dinosaur-with-an-extremely-rare-type-of-diet
- This Turkey-Sized "Hell Chicken" Lived Alongside T. rex and Ate Fruit - The Daily Galaxy, https://dailygalaxy.com/2026/11/hell-chicken-first-fruit-eating-dinosaur/
- Small, Chicken-Like Dinosaur May Have Had a Jaw Built for Fruit - Sci.News, https://www.sci.news/paleontology/infernogallus-jamesi-15128.html
- Rare fossil discovery reveals new dinosaur species that were specialized fruit-eaters - EurekAlert!, https://www.eurekalert.org/news-releases/1149430
- Meet the Hell Chicken: New Dinosaur Was Built to Eat Fruit - FossilGuy.com, https://www.fossilguy.com/news/hell-chicken-infernogallus-fruit-eating-dinosaur/index.htm
- Infernogallus jamesi Fossil on Display at Royal Ontario Museum - Everything Dinosaur, https://blog.everythingdinosaur.com/blog/_archives/2026/11/11/infernogallus-jamesi-fossil-on-display-at-royal-ontario-museum.html
- Were Caenagnathid Theropods Fruit-Eaters? Probably not. - Nick Longrich, https://www.nicklongrich.com/blog/were-caenagnathid-theropods-fruit-eaters-probably-not