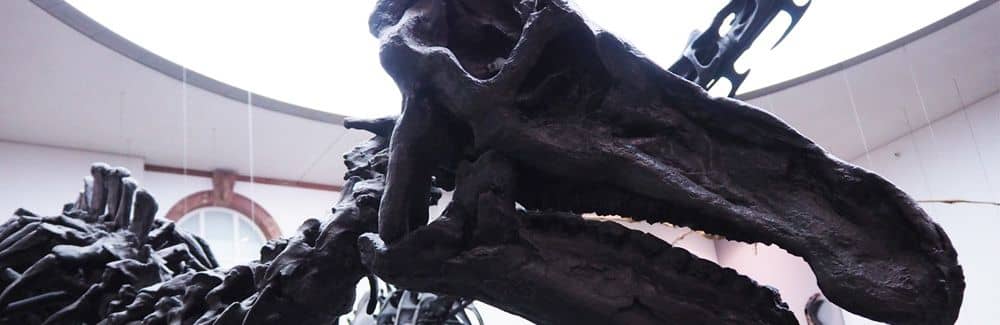
Datos básicos de Iguanodon
| Nombre científico (Género) | Iguanodon |
| Significado del nombre |
Diente de iguana
Iguana [Latín] - odous (diente) [Griego antiguo] |
| Clasificación | Ornitisquios, Ornitópodos, Iguanodontios (Styracosterna / Hadrosauriformes) |
| Longitud total | Aprox. 9-11m (Peso: aprox. 3,4-4,5t) |
| Dieta | Herbívoro |
| Período | Cretácico Inferior, del Barremiense al Aptiense temprano (hace aprox. 126 a 121,4 millones de años) |
| Subclasificación / Nombre de la especie |
Iguanodon bernissartensis (Especie tipo)
Iguanodon galvensis |
| Año de descripción | 1825 |
| Publicación del nombre del género |
Notice on the Iguanodon, a newly discovered fossil reptile, from the sandstone of Tilgate forest, in Sussex.
Philosophical Transactions of the Royal Society. 115 by Mantell, Gideon A. 1825. |
Características: Extremidades anteriores con tres funciones y un esqueleto robusto
La especie representativa de Iguanodon (especie tipo: la especie que sirve de estándar para el grupo), "Iguanodon bernissartensis", era un gran dinosaurio herbívoro con un cuerpo pesado y robusto entre los ornitópodos. Un individuo adulto estándar alcanzaba de 9 a 11 metros de longitud y un peso promedio de unas 3,4 a 3,8 toneladas, mientras que los individuos particularmente grandes reportados en la Península Ibérica (España y Portugal) alcanzaban los 11 metros de longitud y un peso estimado de unas 4,5 toneladas. (La otra especie válida actualmente reconocida, "Iguanodon galvensis", también alcanzaba de 9 a 10 metros de longitud de adulto).
Una característica anatómica notable del Iguanodon es la división del trabajo (diferenciación funcional) que se observa en sus extremidades anteriores (manos). Las patas delanteras eran muy robustas, de hasta el 75% de la longitud de las patas traseras, y los huesos carpianos (huesos de la muñeca) estaban fusionados en una estructura de bloque fijo para soportar el gran peso durante la marcha a cuatro patas. Sus cinco dedos estaban altamente especializados, funcionando como un "arma", "pezuñas" (partes que soportan el peso) y un "órgano prensil", todo dentro de una sola mano.
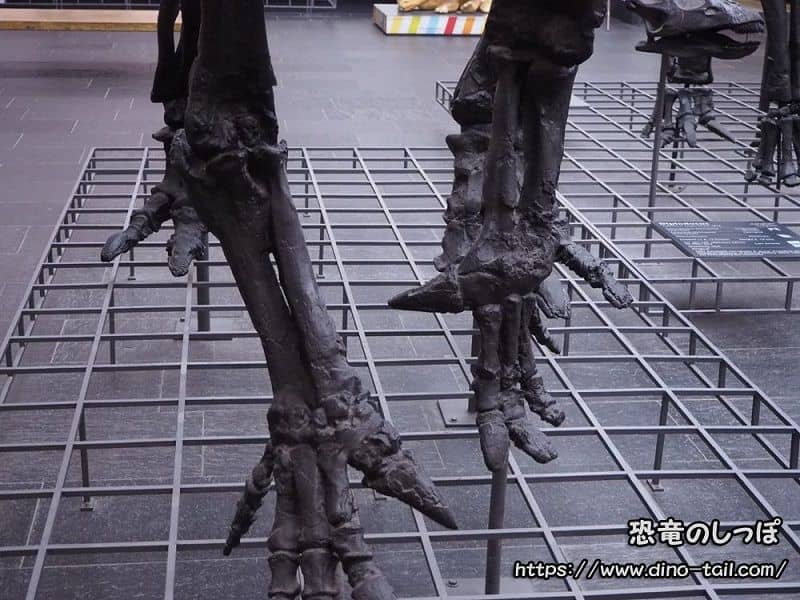
Senckenberg Naturmuseum, Alemania.
- 1er Dedo (Pulgar): Estaba firmemente fusionado a los huesos de la muñeca y modificado en un enorme núcleo óseo cónico, que sobresalía casi en ángulo recto (hacia adentro) con respecto a los tres dedos centrales. En vida, su superficie estaba cubierta por una funda de queratina afilada, el mismo material que las uñas. Utilizando la poderosa fuerza muscular de la extremidad anterior, se cree que se utilizó como un arma punzante defensiva en el combate cuerpo a cuerpo cuando era atacado por dinosaurios carnívoros, así como para ayudar en la alimentación (por ejemplo, para arrancar la corteza dura, cascar semillas grandes o piñas).
- 2do, 3er y 4to Dedos (Índice, Medio y Anular): Los tres dedos centrales estaban agrupados, y las puntas de los huesos eran planas y redondeadas, asemejándose a "pezuñas". Durante la marcha a cuatro patas, tocaban el suelo junto con las almohadillas de las patas, actuando como pilares para distribuir y soportar su gran peso.
- 5to Dedo (Meñique): El meñique más externo era alargado y estaba posicionado lejos de los otros dedos, ofreciendo gran movilidad y flexibilidad. Mientras los dedos centrales estaban fijos como "pezuñas", doblar este 5to dedo permitía acciones diestras como acercar ramas y hojas.
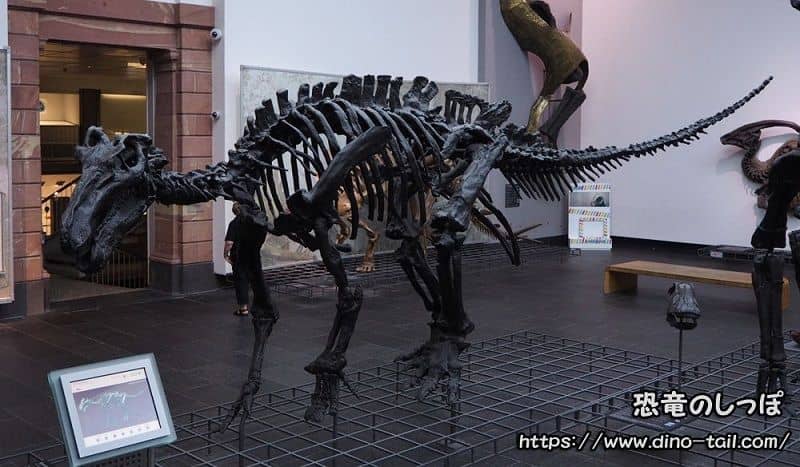
Senckenberg Naturmuseum, Alemania.
La columna vertebral y la pelvis, que soportaban el enorme peso, también muestran adaptaciones mecánicas para soportar la carga.
El sacro, que forma la pelvis, constaba de 8 vértebras fusionadas, creando un "sinsacro" muy fuerte. Además, a lo largo de ambos lados de las espinas neurales que se elevan por encima de las vértebras desde la espalda hasta la parte inferior de la espalda y la cola, unos "tendones osificados" en forma de varilla (tendones que se convirtieron en hueso duro) formaban una estructura entrecruzada, similar a una celosía. Esta red de tendones osificados actuaba como un sistema de suspensión, utilizando la pelvis como punto de apoyo para mantener el torso delantero y la cola trasera horizontales al suelo, evitando que la columna vertebral se hundiera por su propio peso al caminar.
Se han encontrado numerosas huellas fósiles (icnofósiles) de grandes ornitópodos, llamadas "Iguanodontipus" y "Caririchnium", en estratos del Cretácico Inferior en toda Europa.
Las huellas de las patas traseras tienen un talón redondeado y tres dedos gruesos, lo que indica que caminaban con los pies ligeramente hacia adentro. Justo en diagonal delante (anterolateralmente) de estas, hay pequeñas huellas de las patas delanteras en forma de "óvalo" o "figura de 8" dejadas por las puntas del 2do al 4to dedo al tocar el suelo. (La púa del pulgar generalmente se mantenía separada del suelo, por lo que rara vez se registra en las huellas).
Alguna vez se asumió que "normalmente caminaban sobre cuatro patas, pero se levantaban sobre sus patas traseras y corrían sobre dos patas al huir de dinosaurios carnívoros (depredadores) o al moverse a gran velocidad". Sin embargo, los exámenes detallados de rastros continuos bien conservados descubiertos en capas de arenisca en el norte de España y el norte de Alemania revelaron claras huellas de las patas delanteras incluso cuando se movían a altas velocidades, no solo al caminar lentamente. Esto confirma que "el Iguanodon caminaba sobre cuatro patas independientemente de la velocidad de movimiento (era su modo habitual de locomoción)". La postura bípeda erguida se utilizaba principalmente al alimentarse de las hojas en la parte superior de la copa de los árboles, a 4 o 5 metros de altura.
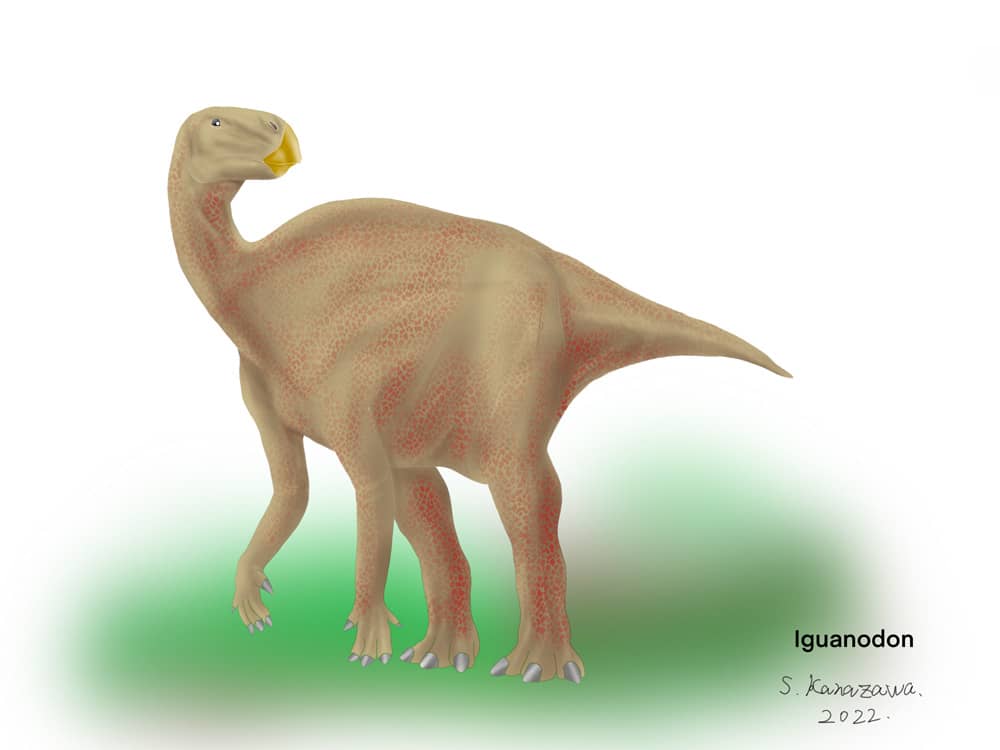
Dieta y las últimas investigaciones sobre el "mecanismo de masticación"
La principal razón por la que los ornitópodos avanzados, incluido el Iguanodon, pudieron prosperar en los ecosistemas terrestres del Mesozoico fue su alta capacidad de "masticación", que les permitía triturar finamente las duras fibras vegetales en su boca. El Iguanodon carecía de dientes en la parte delantera de su boca, desarrollando en su lugar un pico afilado cubierto de queratina. Primero cortaba la vegetación con este pico y luego la trituraba completamente utilizando las filas de dientes superiores e inferiores situadas profundamente en el interior de la boca.
Los mamíferos muelen sus molares deslizando toda su mandíbula inferior de lado a lado (lateralmente). Sin embargo, en el Iguanodon, los huesos de la mandíbula inferior izquierda y derecha (dentarios) estaban conectados a través del hueso "predentario" en la punta. Además, las superficies de masticación de los dientes superiores e inferiores estaban inclinadas "diagonalmente hacia afuera y hacia abajo". Estructuralmente, era imposible mover toda la mandíbula inferior lateralmente como una sola unidad. Sin embargo, en las superficies desgastadas de los dientes se conservan finos arañazos transversales (microdesgaste) indicativos de un triturado lateral.
Para explicar este misterio, la teoría de la "pleurocinesis (movimiento lateral)" fue propuesta en 1984 y aceptada como el modelo estándar durante más de 20 años. Este modelo sugería que cuando las mandíbulas se cerraban, aplicando una fuerza vertical, las filas de dientes en forma de cuña encajaban, provocando que las articulaciones dentro del cráneo se movieran y empujando los huesos de la mandíbula superior y los pómulos hacia afuera para triturar la materia vegetal.
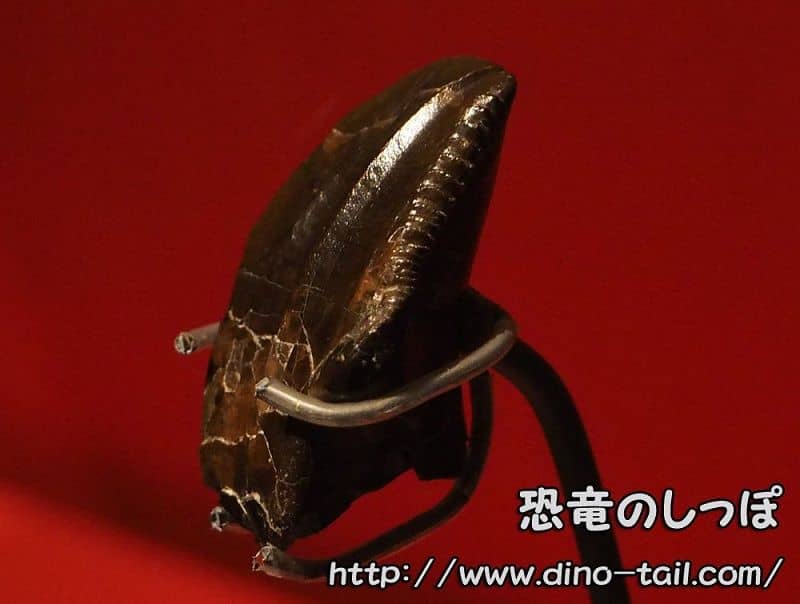
Un fósil histórico descubierto en los primeros días de la investigación sobre los dinosaurios.
Sin embargo, desde finales de la década de 2000 hasta la de 2020, el modelado informático en 3D basado en tomografías computarizadas y el análisis de la amplitud de movimiento revelaron que, si los huesos de la mandíbula superior giraran hacia afuera, causaría una desalineación o dislocación imposible en otras suturas óseas dentro del cráneo. Esto planteó serias dudas sobre el modelo de la pleurocinesis. El modelo de masticación actualmente favorecido sustituye la mandíbula superior por la "mandíbula inferior" como la principal parte móvil. Los huesos de la mandíbula inferior izquierda y derecha (dentarios) no están completamente fusionados en la punta, teniendo una superficie articular móvil con el hueso predentario central, y la articulación de la mandíbula más atrás forma una articulación esférica. Por lo tanto, al morder, los dentarios izquierdo y derecho giraban de forma independiente hacia adentro a lo largo de sus ejes longitudinales. Se cree que la combinación de esto con los movimientos de la mandíbula de adelante hacia atrás lograba un complejo triturado lateral y longitudinal sin forzar la deformación del cráneo.
El tejido blando "Exoparia" y la estrategia de dientes altamente duraderos
Exoparia: Anteriormente, la razón por la que las filas de dientes del Iguanodon estaban insertadas en la boca se explicaba por la presencia de "mejillas musculosas parecidas a las de los mamíferos" para evitar que las plantas trituradas se derramaran. Sin embargo, los estudios morfológicos y osteohistológicos entre 2025 y 2026 propusieron que un fuerte tejido conectivo (ligamentos o músculos) llamado "exoparia" conectaba directamente los pómulos y la superficie exterior de la mandíbula inferior, en lugar de simples músculos de las mejillas. Ubicado justo enfrente de la articulación de la mandíbula, se cree que este tejido actuaba como un poderoso estabilizador, asegurando firmemente la posición del cráneo y la mandíbula inferior para evitar la dislocación durante la masticación vigorosa de plantas duras.
Ciclo de reemplazo de dientes de aprox. 219 días: El análisis de las estructuras internas de los huesos y los dientes reveló que la tasa de reemplazo de los dientes en los Iguanodones adultos era un ciclo lento de aproximadamente 219 días. En comparación con los ornitópodos más primitivos (60-80 días) o los hadrosáuridos del Cretácico Superior, que desarrollaron "baterías dentales" de diminutos dientes apretados para un reemplazo rápido cada 50-80 días, es evidente que los Iguanodones adultos adoptaron una "estrategia de alta durabilidad consistente en agrandar y engrosar los dientes individuales para soportar el intenso desgaste diario durante unos 7 meses".
Además, un estudio exhaustivo publicado en 2026 comparó hasta 15 crías recién nacidas (juveniles perinatales de menos de 200 días de edad y de menos de 1 metro de longitud) de Iguanodon galvensis descubiertos en el yacimiento de San Cristóbal 2 (SC-2) en Galve, España, con adultos. Este descubrimiento indicó un lugar de anidación para la cría de los jóvenes en esa ubicación. También demostró que durante el crecimiento de un juvenil de menos de 1 metro a un adulto de 10 metros, la zona del hocico por delante de las cuencas oculares (región orbital) se hacía significativamente más larga y ancha, y la cresta en la parte superior de la cabeza, donde se unían los músculos para cerrar la mandíbula, se desarrollaba de forma pronunciada, lo que demuestra la evolución del cráneo a través de la "peramorfosis", donde los cambios de crecimiento progresan de manera más extensa.
Además, el análisis con microscopio electrónico de barrido del microdesgaste de los dientes reveló que, mientras que los dientes de los juveniles de menos de 200 días de edad estaban especializados en "cortar" plantas como tijeras, los enormes dientes de los adultos poseían funciones tanto de corte como de "trituración/machaqueo".
A través de estos cambios ontogenéticos en los métodos de alimentación y en la dieta, los Iguanodones adultos podían llegar a una amplia gama de vegetación, desde el nivel del suelo hasta las copas de los árboles de 4 a 5 metros de altura, consumiendo eficientemente recursos vegetales fibrosos y duros como equisetos, cícadas y coníferas que florecían en Europa en aquella época.
El milagro de la mina de carbón de Bernissart y "Iguanodon 2.0"
La paleontología de dinosaurios fue revolucionada por uno de los mayores descubrimientos en la historia de la disciplina, realizado entre 1878 y 1881 en la mina de carbón de Sainte-Barbe (en túneles a 321-322 metros de profundidad) en Bernissart, provincia de Hainaut, en el suroeste de Bélgica. Descubierto por mineros del carbón y excavado bajo la dirección de Louis de Pauw, preparador jefe del Real Museo Belga de Historia Natural (actualmente el Real Instituto Belga de Ciencias Naturales), este conjunto estaba formado por más de 30 esqueletos casi completos de Iguanodon. La mayoría pertenecían al grande y robusto Iguanodon bernissartensis, incluyéndose un dinosaurio más pequeño y grácil (el actual Mantellisaurus).
El conjunto de Bernissart no solo aclaró la anatomía de un esqueleto de dinosaurio completo por primera vez, sino que también impulsó el establecimiento de métodos modernos en la excavación y la ciencia de conservación de fósiles. Los esqueletos, enterrados rápidamente en un ambiente sin oxígeno en las profundidades subterráneas, contenían grandes cantidades de "pirita (sulfuro de hierro)" en los diminutos poros de los huesos. Cuando se lleva a la superficie y se expone al oxígeno y a la humedad, se oxida para formar sulfato de hierro y se expande, provocando un grave fenómeno de deterioro conocido como la "enfermedad de la pirita", que desmorona los huesos desde el interior.
Durante la excavación, que comenzó en mayo de 1878, de Pauw ideó el "método de la camisa de yeso", en el que los fósiles se protegían con papel y arcilla líquida, se cubrían de yeso, se reforzaban con hierro y madera, y se extraían en bloques junto con la roca circundante. Esta técnica sigue siendo un estándar en las excavaciones modernas de dinosaurios (paleontología de vertebrados). Después de su transporte al laboratorio, para suprimir la enfermedad de la pirita, los huesos se trataron con un adhesivo de gelatina animal llamado "cola de Lyon", y los huecos internos se rellenaron con una mezcla de papel, cola y polvos de talco como medida de conservación.
La paleontología digital "Iguanodon 2.0" revela una vida sedentaria
En la década de 2020, con el apoyo de la Oficina de Política Científica Federal de Bélgica (BELSPO), se llevó a cabo un proyecto académico multidisciplinario llamado "Iguanodon 2.0". Más de 2.000 huesos de la colección de Bernissart se digitalizaron utilizando métodos no destructivos, como el escaneo 3D de alta resolución y la microtomografía computarizada (micro-CT).
El análisis de la composición química de los huesos (geoquímica y análisis de isótopos estables) en este proyecto reveló que Iguanodon bernissartensis era un animal "sedentario" que no realizaba migraciones a larga distancia, viviendo dentro de un hábitat restringido con cambios estacionales marcados. Además, los estudios paleopatológicos que examinaron los rastros de enfermedades y lesiones en los huesos demostraron que, a pesar de que la mayoría de los especímenes de Bernissart eran adultos maduros, se encontraron muy pocas anomalías (lesiones) o fracturas curadas, lo que indica que la manada en su conjunto gozaba de una salud excelente. Esto contrasta claramente con las poblaciones de hadrosáuridos del Cretácico Superior, en las que se observan enfermedades óseas y lesiones (traumatismos) graves con gran frecuencia, lo que sugiere que la población de Bernissart del Cretácico Inferior se enfrentaba a menores riesgos de lesiones y a menos estrés derivado de intensos conflictos internos en el seno de la manada.
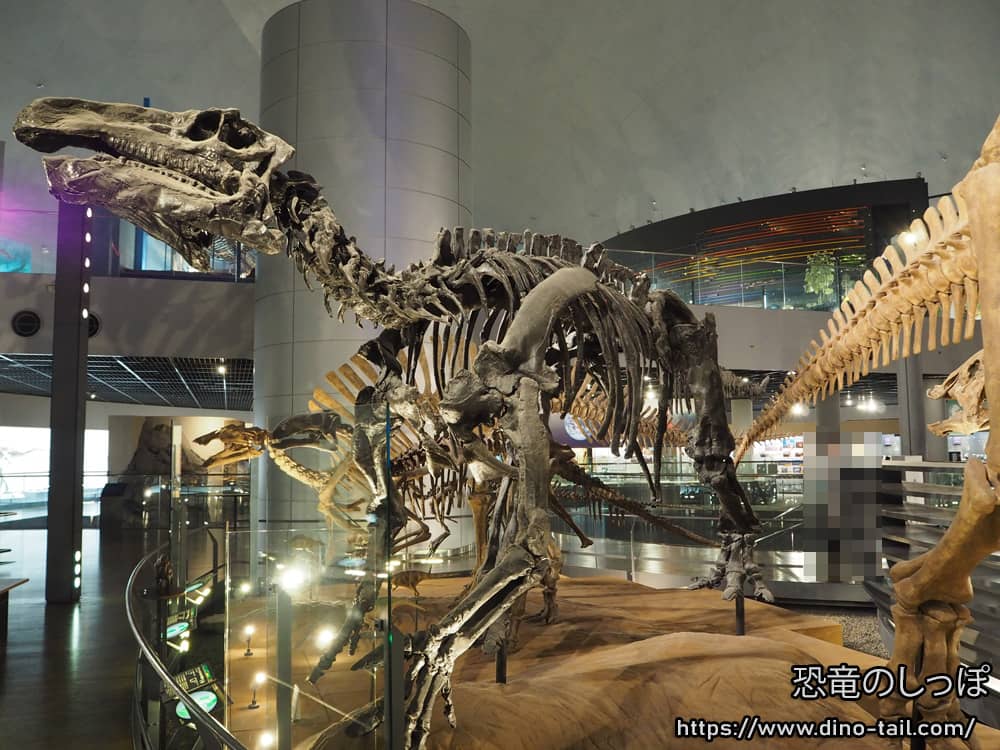
Iguanodon: Descubrimiento y transición histórica de su "apariencia restaurada"
La historia de la investigación sobre el Iguanodon comenzó en 1822, antes de que existiera siquiera la palabra "Dinosauria", y sirve como un microcosmos que demuestra "cómo la humanidad reconoció a los dinosaurios y cómo se han reconstruido científicamente sus formas de vida".
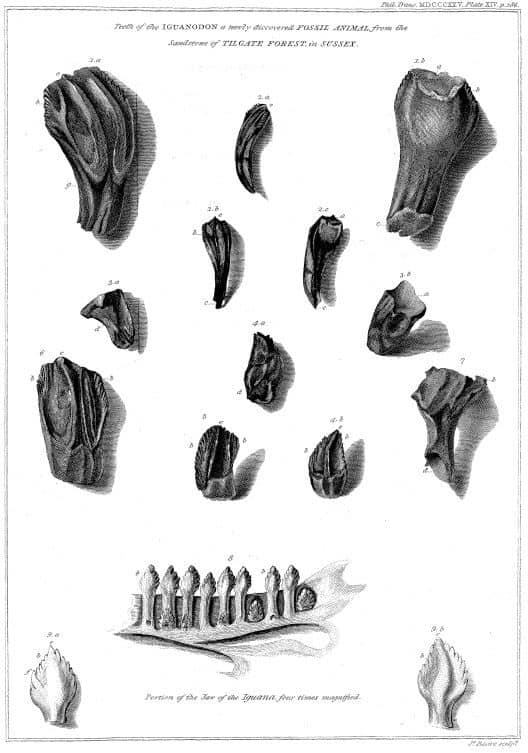
Notice on the Iguanodon, a newly discovered fossil reptile, from the sandstone of Tilgate forest, in Sussex. Philosophical Transactions of the Royal Society. 115 by Mantell, Gideon A. 1825.
En 1822, en estratos (Valanginiense) cerca de Cuckfield en Sussex, al sur de Inglaterra, Mary Ann Mantell, esposa del médico y paleontólogo Gideon Mantell, descubrió dientes fósiles de un enorme reptil herbívoro. Inicialmente, Georges Cuvier, la autoridad en "anatomía comparada", identificó erróneamente estos dientes como pertenecientes a un rinoceronte actual, aunque más tarde se retractaría de esta opinión. Mantell comparó las superficies desgastadas y los bordes aserrados de los dientes fósiles con el espécimen esquelético de una iguana actual en el Museo del Real Colegio de Cirujanos en Londres, y sus sorprendentes similitudes lo convencieron de la existencia de un reptil herbívoro gigante y extinto.
Luego, en 1825, nombró formalmente a esta criatura "Iguanodon" (que significa "diente de iguana") en la Royal Society, una sociedad erudita británica. Después del Megalosaurus, descrito en 1824, este fue el segundo dinosaurio en ser nombrado e identificado científicamente. Junto con el Hylaeosaurus, que Mantell describiría más adelante, estos tres dinosaurios británicos formaron la base directa para que el anatomista Richard Owen creara el nuevo grupo taxonómico "Dinosauria" en 1841 (publicado en 1842).
Durante las fases iniciales, en las que el aspecto general se deducía únicamente a partir de dientes y huesos de extremidades aislados, se produjo un importante punto de inflexión con el descubrimiento del "Iguanodon de Maidstone" (conocido comúnmente como la pieza de Mantell) en 1834. En una cantera de Maidstone, Kent, Inglaterra, el primer "esqueleto parcialmente articulado" (huesos todavía conectados entre sí) que contenía costillas, vértebras, huesos de extremidades, parte de la pelvis y dientes quedó expuesto durante unas voladuras de rocas. (Este histórico espécimen de Maidstone se reclasificaría más tarde en el género estrechamente emparentado Mantellisaurus tras posteriores revisiones taxonómicas). Esto proporcionó una base para estimar la disposición del esqueleto, pero Mantell interpretó un enorme núcleo óseo cónico (en realidad, la púa del pulgar) encontrado junto a él como un "cuerno en la nariz", inspirándose en los rinocerontes actuales y en las iguanas cornudas.
Esta imagen temprana de una "bestia cuadrúpeda y pesada con un cuerno en el hocico" se consolidó con las primeras esculturas de dinosaurios a tamaño real del mundo, inauguradas en Crystal Palace Park en Sydenham, en el sur de Londres, en 1854. Esculpida por Benjamin Waterhouse Hawkins bajo la supervisión académica de Richard Owen, la estatua del Iguanodon, de aproximadamente 9,1 metros de longitud, presentaba una postura cuadrúpeda robusta, parecida a la de un rinoceronte o un elefante, y un cuerno nasal. En la víspera de Año Nuevo, el 31 de diciembre de 1853, antes de la inauguración pública, se celebró una cena en el interior del gigantesco molde de arcilla (el espacio interior del torso) que se utilizó para crear la estatua del Iguanodon. Veintiún destacados científicos e intelectuales, entre ellos Owen, fueron invitados, y el acontecimiento tuvo un amplio eco en los periódicos, convirtiéndose en un símbolo intelectual de la Gran Bretaña victoriana.
La transición histórica en "3 etapas" de la apariencia restaurada
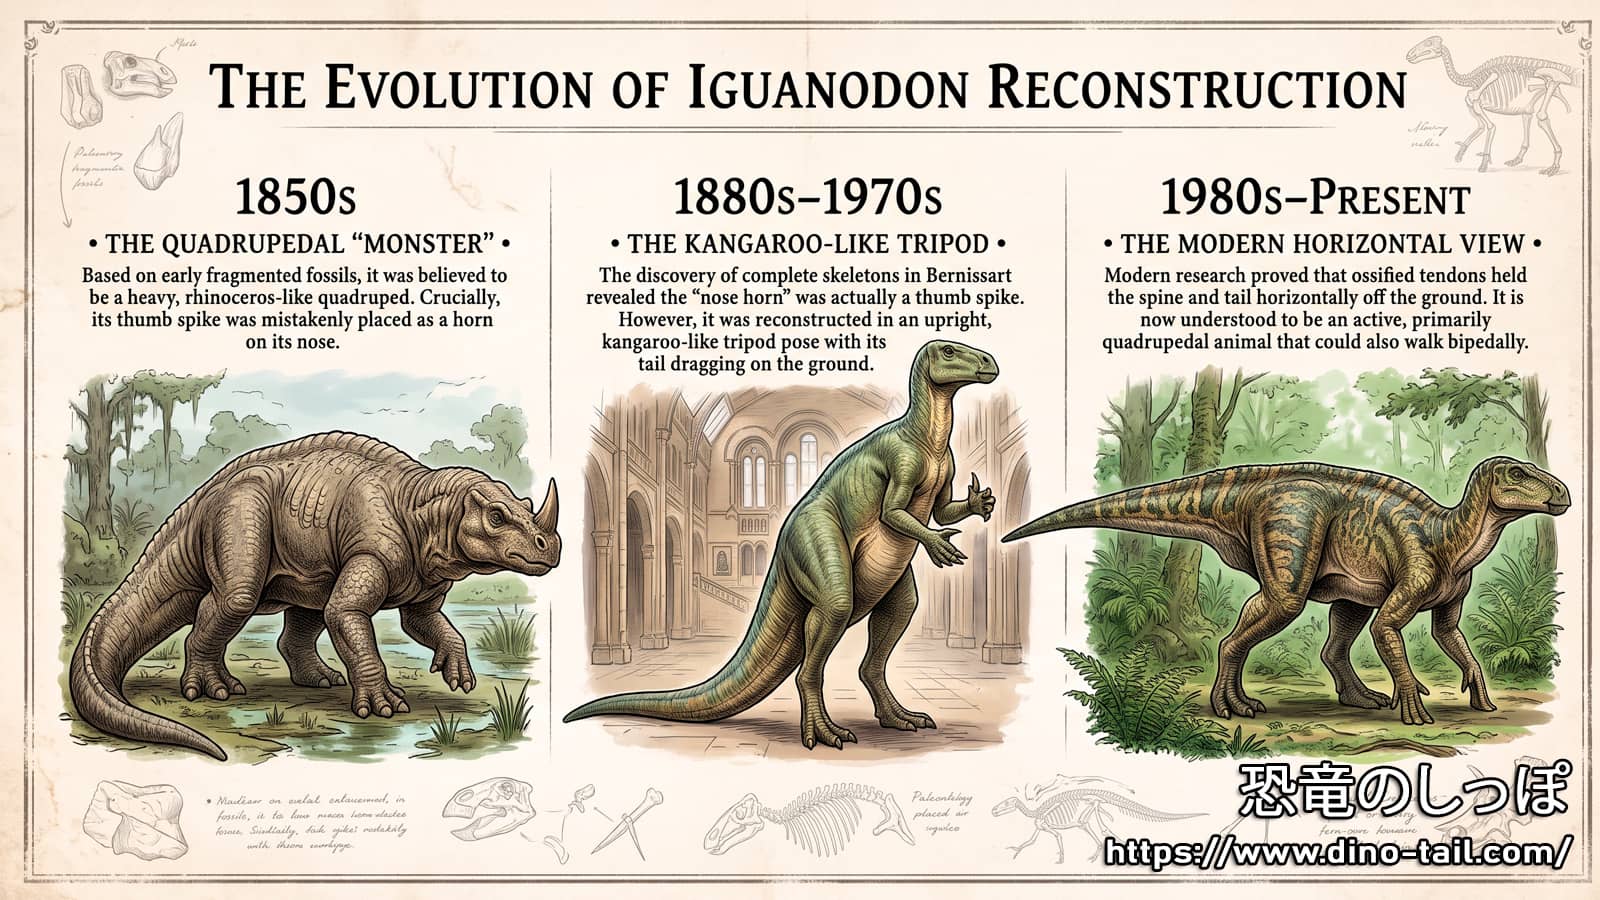
Se ilustran las 3 etapas de la reconstrucción científica del "Iguanodon" cronológicamente de izquierda a derecha.
- Bestia cuadrúpeda con cuerno nasal (década de 1850): En las primeras investigaciones basadas en fósiles fragmentarios, la púa del pulgar se colocó erróneamente como un "cuerno en la nariz", y se reconstruyó como un animal cuadrúpedo y pesado, parecido a un rinoceronte.
- Postura bípeda erguida tipo canguro (década de 1880-década de 1970): El descubrimiento de esqueletos completos en la mina de carbón de Bernissart en 1878 demostró que el "cuerno nasal" era en realidad una "púa del pulgar". Sin embargo, los paleontólogos Louis Dollo y de Pauw, que completaron el primer montaje de esqueleto en 3D (individuo "Q", número de espécimen RBINS R51) en 1882 utilizando la Capilla de San Jorge de Bruselas como taller, modelaron directamente la disposición de los huesos inspirándose en los canguros y los casuarios (grandes aves no voladoras) actuales. En consecuencia, el Iguanodon fue reconstruido en una "postura bípeda parecida a la de un canguro, apoyando la cola en el suelo a modo de 'tercera pata' y manteniendo la columna vertebral casi vertical". Aunque esta postura contenía errores estructurales que doblaban de forma poco natural la secuencia natural de los huesos de la cola, después de que el Museo de Historia Natural de Londres adquiriera una réplica en 1895, las copias se extendieron a los principales museos de todo el mundo, estableciéndola como la postura estándar de los dinosaurios durante casi 100 años.
- Postura horizontal actual y cuadrupedismo (de 1980 a la actualidad): En 1980, la exhaustiva redescripción de los especímenes de Bernissart por parte del paleontólogo británico David Norman puso fin a un siglo de postura canguro. La red de tendones osificados a lo largo de la columna vertebral y la cola, que sujetaba rígidamente la columna vertebral, en combinación con unas extremidades anteriores y unos huesos de la muñeca robustos adaptados para soportar el peso, dejó claro que el Iguanodon era principalmente un animal cuadrúpedo que mantenía su columna vertebral y su cola casi en posición horizontal con respecto al suelo.
Reorganización del "taxón cajón de sastre" y la diversidad en la Europa del Cretácico Inferior
Desde mediados del siglo XIX hasta finales del siglo XX, el género Iguanodon se había convertido en un "taxón cajón de sastre" que aceptaba casi cualquier fósil de ornitópodo grande hallado en estratos del Cretácico Inferior del hemisferio norte sin una verificación suficiente. La causa principal de esta confusión taxonómica radica en el hecho de que, cuando Mantell creó el género Iguanodon en 1825, no designó un nombre de especie específico, y se basó únicamente en "un único diente fósil pobre en características" del piso Valanginiense. En 1829, este diente recibió el nombre de Iguanodon anglicus y durante mucho tiempo fue tratado como la especie tipo. Sin embargo, un solo diente es un "nomen dubium" (nombre dudoso) indistinguible de otras especies, y estaba alejado cronológica y morfológicamente de los esqueletos belgas completos y de los esqueletos ingleses gráciles de periodos posteriores (del Barremiense al Aptiense temprano).
Para resolver esta situación, la Comisión Internacional de Nomenclatura Zoológica (ICZN), que rige las normas de denominación de los animales, publicó el "Dictamen 1947" en el año 2000. Este designaba oficialmente a Iguanodon bernissartensis, basado en el esqueleto completo procedente de Bernissart, Bélgica (número de espécimen IRSNB R51), como la nueva especie tipo del género Iguanodon, en sustitución del dudoso I. anglicus. Con este histórico dictamen, el nombre "Iguanodon" quedó estrictamente restringido a animales de complexión robusta. Como resultado, las únicas dos especies ampliamente reconocidas como válidas en la actualidad son la especie tipo I. bernissartensis y Iguanodon galvensis, descrita en 2015 a partir de restos hallados en la Formación Camarillas en Teruel, España (aunque hay cierto debate sobre si clasificarla en un género distinto, Paulodon).
| Nombre antiguo (Descrito como género Iguanodon) | Clasificación actual / Nombre válido | Origen e historia de la reclasificación |
|---|---|---|
| Iguanodon anglicus | Nomen dubium | Sussex, Inglaterra (Valanginiense). Basado en un solo diente indistinguible de otras especies, perdió su estatus de especie tipo debido a la decisión de la ICZN del 2000. |
| Iguanodon atherfieldensis / I. mantelli | Mantellisaurus (Mantellisaurus atherfieldensis) |
Inglaterra, Bélgica (Barremiense-Aptiense). Separado en un género distinto en 2007. Un género más pequeño y grácil contemporáneo de I. bernissartensis; incluye el espécimen de Maidstone y pequeños esqueletos de Bernissart (IRSNB 1551). |
| Iguanodon dawsoni | Barilium (Barilium dawsoni) |
Sussex, Inglaterra (Valanginiense). Reclasificado en un género distinto debido a las diferencias en la morfología de la pelvis (ilion) y las vértebras. |
| Iguanodon fittoni | Hypselospinus (Hypselospinus fittoni) |
Sussex, Inglaterra (Valanginiense). Separado en un género distinto basado en características como unas espinas neurales altas en la espalda y una mandíbula inferior (dentario) alargada. |
| Iguanodon lakotaensis | Dakotadon (Dakotadon lakotaensis) |
Dakota del Sur, EE. UU. (Barremiense). Una vez considerado el único Iguanodon norteamericano, fue reclasificado en 2008 como Dakotadon, un género más basal que Iguanodon. |
| Iguanodon orientalis | Nomen dubium / Altirhinus (Altirhinus kurzanovi) |
Mongolia (Cretácico Inferior). El espécimen tipo de 1952 era fragmentario y dudoso. Un cráneo con un hocico alto encontrado en 1981 fue descrito como el nuevo género Altirhinus en 1998. |
Además, especialmente en la década de 2020, se han descubierto y descrito varios géneros y especies nuevos de dinosaurios emparentados (hadrosauriformes) que vivieron contemporáneamente con Iguanodon y Mantellisaurus a partir de hallazgos en la Formación Wessex (Barremiense) en la Isla de Wight, en el sur de Inglaterra. Brighstoneus simmondsi (aprox. 8 m de longitud), que presentaba una distintiva "protuberancia nasal bulbosa" en el hueso nasal y 28 alvéolos dentales, recibió su nombre en 2021. En 2024, se nombró Comptonatus chasei (aprox. 4 m, 1 tonelada) basándose en el esqueleto de iguanodontio británico más completo hallado en un siglo. Y en 2025 se nombró Istiorachis macarthurae, caracterizado por unas espinas neurales extremadamente alargadas en el lomo y la cola que formaban una estructura "en forma de vela".
Estos descubrimientos demuestran que la Europa del Cretácico Inferior no era un "ecosistema monótono dominado por un único género de Iguanodon". La Europa de la época era una región muy diversa en la que el enorme Iguanodon (de hasta 11 m y 4,5 t) se situaba en la cúspide, coexistiendo con una variedad de iguanodontios que desarrollaron órganos de exhibición visual como "protuberancias nasales" y "velas dorsales" para el atractivo y el reconocimiento intraespecíficos, así como diferentes recuentos de dientes y estructuras de mandíbula, lo que les permitía compartir el hábitat (partición de nichos) alimentándose de diferentes plantas y adoptando diferentes modos de vida.