
Sobre Archelon
| Nombre científico (Género) | Archelon |
| Significado del nombre | Tortuga gobernante o tortuga primitiva (el nombre de la especie ischyros significa "poderoso, fuerte") |
| Clasificación | Reptilia, Testudines, Cryptodira, Protostegidae |
| Longitud total | Aprox. 3,5-4,6 m (Ancho aprox. 4,0-4,9 m, Peso estimado 2,2-3,2 t) |
| Dieta | Carnívoro (anteriormente se pensaba que era omnívoro) |
| Período | Cretácico Superior Campaniense (hace aprox. 80,5 a 72 millones de años) |
| Subclasificación / Nombre de la especie | Archelon ischyros |
| Año de descripción | 1896 |
| Publicación del nombre del género |
Archelon ischyros: a new gigantic cryptodire testudinate from the Fort Pierre Cretaceous of South Dakota.
American Journal of Science, 4th Series 2(12) Wieland, G. R. 1896. |
Características: La tortuga marina más grande de la historia
Archelon fue la tortuga marina más grande de la historia, viviendo en la "Vía Marítima Interior Occidental", un vasto mar interior que dividía el continente norteamericano de norte a sur durante el período Cretácico Superior.

Incluso en el momento del descubrimiento del primer espécimen (Espécimen tipo: YPM 3000) en 1895, alcanzó los 3,52 metros de longitud. Sin embargo, el espécimen de esqueleto completo más grande de la historia, "Brigitta", descubierto en Dakota del Sur, EE. UU. en 1992 y actualmente albergado en el Museo de Historia Natural de Viena, Austria, alcanza una longitud total de unos 4,6 metros, una anchura de unos 4,0 a 4,9 metros con sus aletas delanteras extendidas, y un peso estimado de 2,2 a 3,2 toneladas. El cráneo de un individuo grande por sí solo alcanzaba hasta 100 centímetros (1 metro), presumiendo de más del doble de la longitud y casi 3,5 a 5 veces la masa de la tortuga laúd, la tortuga marina existente más grande (longitud aprox. 2 metros, peso máx. aprox. 650 kilogramos).
Caparazón coriáceo ligero y plastrón pesado en forma de estrella
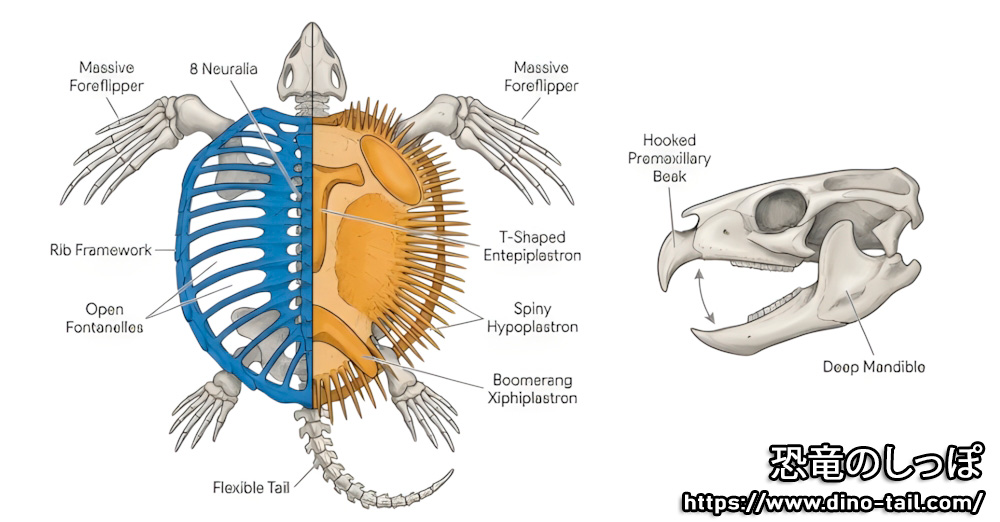
Lado izquierdo (azul): Caparazón dorsal, Lado derecho (rojo): Plastrón ventral
El secreto del enorme tamaño de Archelon radica en su estructura de caparazón única, que evolucionó de manera completamente diferente en su espalda (caparazón dorsal) y vientre (plastrón ventral). El caparazón de su espalda había perdido por completo las placas óseas sólidas y duras y las escamas superficiales que se ven en las tortugas comunes. En cambio, la osificación de las costillas se redujo, dejando grandes espacios (fontanelas) entre los huesos, y se cree que una piel coriácea gruesa y dura se extendía sobre este marco ligero. Además, los huesos del caparazón en sí eran un tejido esponjoso y ligero similar al de los delfines (cetáceos) y los ictiosaurios, lo que ayudaba a ajustar la flotabilidad de su cuerpo de más de 2 toneladas y a ahorrar energía para nadar.
Por otro lado, el "plastrón" que cubría su vientre era, en marcado contraste con el caparazón dorsal, extremadamente grueso y pesado, alcanzando una longitud máxima de 2,1 metros. El plastrón estaba fuertemente reforzado por cuatro grupos de huesos en forma de estrella con púas radiales. Particularmente alrededor del "hipoplastrón" posterior, se alineaban un total de 54 púas afiladas. Esta estructura de "hacer la espalda lo más ligera posible y el vientre grueso y resistente" funcionaba como "lastre" para estabilizar su centro de gravedad al nadar en mar abierto, y también servía como escudo para sostener su enorme cuerpo al descansar en el fondo del mar embarrado y protegerse de los grandes depredadores que atacaban desde abajo.

Además, sus extremidades anteriores sin garras habían evolucionado hasta convertirse en enormes aletas en forma de remo, generando una fuerte propulsión. Si bien por lo general navegaba tranquilamente en mar abierto, se estima que en situaciones de emergencia al huir de los depredadores, podía lograr una natación a alta velocidad de entre 30 y 35 kilómetros por hora. Su cola, compuesta por unos 18 huesos, también podía doblarse casi 90 grados horizontalmente, actuando como un "timón" para cambiar de dirección.
Comparación con otras tortugas gigantes extintas
A lo largo de la historia de la Tierra, ha habido otras tortugas gigantes además de Archelon. Por ejemplo, la tortuga de agua dulce "Stupendemys (Stupendemys geographicus)", que vivió en los ríos y humedales de América del Sur hace unos 5 millones de años (Mioceno tardío del Neógeno), tenía un caparazón que por sí solo alcanzaba un máximo de 3,3 metros, superando a Archelon (longitud del caparazón aprox. 1,9 a 2,2 metros) solo en la "longitud del caparazón".
Además, la tortuga marina más grande de Europa, "Leviathanochelys (Leviathanochelys aenigmatica)", reportada en los estratos del Cretácico Superior en España en 2022, alcanzó una longitud total estimada de unos 3,7 metros y un peso estimado de unas 2 toneladas. El ancho de su pelvis de unos 88,9 centímetros superó ligeramente el ancho de la pelvis de Archelon (81 centímetros). Este descubrimiento indica que el gigantismo de las tortugas marinas en los mares del Cretácico Superior ocurrió de manera independiente en regiones marinas separadas y linajes distintos, es decir, América del Norte y Europa. Sin embargo, en términos de longitud total completa (4,6 metros) incluyendo la cabeza larga, la cola y las enormes aletas, y su peso estimado (máx. 3,2 toneladas), Archelon todavía mantiene el récord como la "tortuga más grande de la historia".
| Nombre de la especie (Nombre científico) | Grupo taxonómico / Entorno del hábitat | Período / Región | Longitud total (Máx. estimado) | Longitud del caparazón / Ancho de la pelvis | Peso estimado |
|---|---|---|---|---|---|
| Archelon (Archelon ischyros) |
Protostegidae (Mar poco profundo a océano abierto) |
Cretácico Superior (América del Norte) |
4,6 m (Ancho 4,0-4,9 m) |
Longitud del caparazón aprox. 1,9-2,2 m Ancho de la pelvis 81,0 cm |
2,2-3,2 t |
| Leviathanochelys (Leviathanochelys aenigmatica) |
Chelonioidea basal (Océano abierto) |
Cretácico Superior (Europa, España) |
Aprox. 3,7 m | Caparazón preservado parcialmente Ancho de la pelvis 88,9 cm |
Aprox. 2,0 t |
| Protostega (Protostega gigas) |
Protostegidae (Mar poco profundo a océano abierto) |
Cretácico Superior (América del Norte) |
Aprox. 3,0-3,4 m (Ancho 4,7 m) |
Caparazón ligero/reducido | Aprox. 1,5 t |
| Stupendemys (Stupendemys geographicus) |
Pleurodira (Agua dulce, grandes ríos) |
Mioceno tardío (América del Sur) |
Aprox. 3,5-4,0 m | Longitud del caparazón máx. 3,3 m (Ancho 2,2 m) |
Aprox. 1,25 t (Algunas estimaciones >2t) |
| Tortuga laúd (Especie actual más grande) (Dermochelys coriacea) |
Dermochelyidae (Océano abierto) |
Actual (Océanos globales) |
Aprox. 2,0 m | Longitud del caparazón aprox. 1,5-1,8 m | Máx. aprox. 0,65 t (650 kg) |
Relación con la tortuga laúd: La apariencia idéntica es resultado de una "evolución convergente"
Debido a similitudes como la reducción del caparazón óseo y estar cubierto con piel coriácea, alguna vez se pensó que la familia "Protostegidae", a la que pertenece Archelon, era un ancestro directo o un pariente muy cercano de las tortugas laúd modernas (Dermochelyidae).
Sin embargo, análisis precisos recientes del interior del cráneo mediante escáneres micro-CT y la investigación de reloj molecular utilizando ADN están refutando esta visión. Los últimos análisis filogenéticos revelan que Protostegidae es un linaje antiguo completamente distinto (Chelonioidea troncal o criptodiros basales independientes) que se aventuró de forma independiente en el mar durante el Jurásico Tardío al Cretácico Temprano, mucho antes de la divergencia de las tortugas marinas modernas (Cheloniidae y Dermochelyidae).
En otras palabras, las sorprendentes características similares que se observan en Archelon y las tortugas laúd modernas no se deben a una relación directa padre-hijo. En cambio, son ejemplos principales de "evolución convergente", donde diferentes linajes de tortugas evolucionaron independientemente en diferentes momentos para adaptarse al mismo estilo de vida de "hacerse enorme en el vasto océano abierto y nadar a altas velocidades", lo que resultó en rasgos muy similares.
Velocidad de crecimiento asombrosa y "Gigantotermia"
Las similitudes entre Archelon y las tortugas laúd van más allá de la simple apariencia de sus caparazones. La investigación que examina la estructura microscópica (histología ósea) de sus huesos ha revelado que Archelon y su pariente Protostega no crecían lentamente como las tortugas marinas típicas. En cambio, al igual que las tortugas laúd modernas, poseían tejido óseo especializado (hueso fibrolamelar) ricamente provisto de redes vasculares, lo que indica un crecimiento asombrosamente rápido durante su etapa juvenil. La superficie de los huesos de las extremidades de Archelon incluso conserva "marcas de estrías" que muestran la rápida expansión y elongación de los huesos, lo que sugiere que podrían haber alcanzado el tamaño de madurez en unos 10 años desde su eclosión.
Un crecimiento óseo tan rápido es evidencia de un metabolismo energético interno altamente activo. Se presume que Archelon, al igual que la tortuga laúd moderna, había adquirido la "gigantotermia", manteniendo una temperatura corporal más alta que el agua de mar circundante debido a su cuerpo masivo y al calor generado por el movimiento muscular. Esto les habría permitido mantenerse activos incluso en los fríos mares del norte del Cretácico Superior.
[Glosario]
・Evolución convergente: Fenómeno en el que grupos filogenéticamente diferentes (parientes lejanos o diferentes tipos de criaturas) evolucionan de forma independiente con formas corporales y funciones muy similares como resultado de la adaptación a entornos o estilos de vida similares.
・Gigantotermia: Mecanismo en el que un tamaño corporal muy grande reduce la "relación superficie-volumen", lo que dificulta que el calor generado internamente por el movimiento muscular escape al exterior, permitiendo que el animal mantenga de manera estable una temperatura corporal más alta que la del agua o aire circundante.
Pico poderoso y ecología: Un cazador que gobernaba desde la superficie hasta el lecho marino

El cráneo de Archelon era alargado, y aunque no tenía dientes, la punta de su mandíbula superior presentaba un pico enorme curvado en un gancho afilado, como el de un águila o un halcón. Además, el ángulo donde se unían los huesos de la mandíbula inferior izquierda y derecha era extremadamente estrecho y agudo (menos de 25 grados), y la punta fusionada formaba una estructura muy gruesa y pesada. Se sabe que al "golpear hacia abajo como un martillo" con esta pesada mandíbula inferior contra un resistente paladar en forma de V en la parte posterior de la mandíbula superior, podía ejercer un tremendo poder de trituración. Además, sus fosas nasales (narinas externas) se abrían hacia arriba en una posición alta en la parte frontal de su cráneo, una disposición perfectamente adecuada para respirar manteniendo su cuerpo sumergido y asomando solo la parte superior de su cabeza ligeramente por encima de la superficie del agua.
Aunque anteriormente existían teorías de que era omnívoro, comiendo también algas, o que se alimentaba únicamente de criaturas de cuerpo blando como las medusas, las últimas investigaciones sugieren que era un carnívoro puro que utilizaba varios recursos submarinos desde la superficie hasta el lecho marino.
Al nadar cerca de la superficie o en aguas medias, usaba su afilado pico en forma de gancho para atrapar presas escurridizas como medusas, calamares (belemnitas), amonites nadadores, nautilos y peces grandes. Al descender al lecho marino, se especula que estabilizaba su cuerpo en el fondo fangoso utilizando su plastrón grueso y pesado y se arrastraba, golpeando con su mandíbula inferior similar a un martillo para triturar y comer bivalvos gigantes (Inoceramus) y crustáceos de caparazón duro.
Dudas sobre la teoría de la "Hibernación en el lecho marino (Brumación)"
Se estima que el espécimen más grande "Brigitta" del Museo de Historia Natural de Viena fue un individuo viejo que vivió hasta los 100 años, según sus registros de crecimiento óseo. Debido a que este fósil fue encontrado enterrado en lodo en el fondo del mar, en el pasado se propuso la hipótesis de que "murió mientras se enterraba en el lodo del lecho marino para hibernar (brumación en ectotermos) como algunas tortugas de agua dulce".
Sin embargo, actualmente existen fuertes dudas sobre esta "teoría de la hibernación en el lecho marino a largo plazo". Un Archelon masivo con alto metabolismo y gigantotermia, que dependía de la respiración pulmonar, habría necesitado salir a la superficie con frecuencia para respirar y evitar ahogarse. Se considera fisiológicamente imposible que haya permanecido completamente sumergido e inactivo en el lodo durante largos períodos. Por lo tanto, se considera más razonable interpretar que "Brigitta" no fue enterrada viva durante la hibernación, sino que después de que el individuo murió de vejez u otras causas y se hundió en el lecho marino, fue rápidamente cubierto por el fino lodo de la formación de esquisto de Pierre y conservado como fósil.
Competencia por la supervivencia en la Vía Marítima Interior Occidental y el misterio de la extinción
Se han descubierto fósiles de Archelon en la formación de "esquisto de Pierre" (Pierre Shale) del Cretácico Superior, que se extiende por Dakota del Sur, Wyoming y Dakota del Norte en los Estados Unidos. Aunque existieron fósiles clasificados como diferentes especies (Archelon marshii y Archelon copei) en los primeros días de la investigación, evaluaciones posteriores los reclasificaron en los géneros Protostega y Kansasstega, respectivamente. Por lo tanto, solo la especie tipo Archelon ischyros se reconoce actualmente como la única especie del género Archelon.
La parte norte de la Vía Marítima Interior Occidental donde vivía Archelon era un mar que albergaba un rico ecosistema, pero también estaba plagado de depredadores ápice peligrosos sin precedentes en la historia de la Tierra. Estaba habitado por lagartos marinos gigantes llamados mosasaurios (como Tylosaurus y Hainosaurus) que alcanzaban entre 10 y 15 metros de longitud, plesiosaurios, el feroz gran tiburón Cretoxyrhina, el pez carnívoro gigante Xiphactinus que alcanzaba de 5 a 6 metros, y aves marinas buceadoras con dientes como los Hesperornis a lo largo de las costas. Si bien el enorme cuerpo de más de 4 metros de un Archelon adulto era su mayor defensa, el hecho de que su espalda estuviera cubierta no por un duro caparazón óseo sino por piel coriácea significaba que no podía escapar ileso de los ataques de superdepredadores como los mosasaurios.
Cambios ambientales complejos y el proceso de extinción
El registro fósil de Archelon se concentra en estratos de hace unos 80,5 a 72 millones de años (del Campaniense tardío al Maastrichtiense temprano), y se cree que desaparecieron antes del evento de extinción masiva al final del Cretácico hace unos 66 millones de años (aunque se señala que simplemente podrían faltar en el registro fósil debido a la erosión de los estratos más recientes). Se cree que la extinción de Archelon, que había logrado altos niveles de adaptación al océano abierto, fue impulsada por tres factores complejos:
El primero fue la "contracción de la Vía Marítima Interior Occidental (regresión marina)". El vasto mar interior que atravesaba América del Norte se redujo gradualmente y se hizo menos profundo debido a movimientos orogénicos y fluctuaciones del nivel del mar, lo que provocó la pérdida de los hábitats primarios y las zonas de alimentación de Archelon.
El segundo fue el "enfriamiento climático rápido y caída de la temperatura del agua de mar". El enfriamiento global avanzó hacia el final del Cretácico, y se estima que la temperatura promedio del agua en el mar interior norteño donde vivía Archelon cayó a 7-12°C. Si bien los Archelon adultos podían soportar algo de frío debido a la gigantotermia, las crías recién nacidas (juveniles) carecían de la capacidad para retener el calor corporal, y la caída de las temperaturas terrestres en sus sitios de anidación asestó un duro golpe a las tasas de eclosión de los huevos.
El tercero fue la "alta tasa de mortalidad de huevos y juveniles". No importaba cuán orgullosos ostentaran un cuerpo de 3 toneladas en el océano, los Archelon, siendo reptiles, tenían que salir a tierra en playas de arena para desovar. A medida que las costas disponibles para anidar se vieron limitadas por la reducción del mar interior, se intensificó la depredación de huevos y crías por parte de dinosaurios terrestres, mamíferos y aves. Además, los juveniles indefensos, inmediatamente después de entrar al mar, estaban expuestos a una intensa presión de depredación por parte de mosasaurios, peces grandes y tiburones, lo que llevó a la creencia de que ya no podían mantener su población.
El documento de descripción de Archelon y el drama del espécimen tipo "YPM 3000"

Fuente: Archelon ischyros: a new gigantic cryptodire testudinate from the Fort Pierre Cretaceous of South Dakota. American Journal of Science, 4th Series 2(12) Wieland, G. R. 1896.
Los fósiles de Archelon fueron descubiertos por primera vez en 1895.
El paleontólogo estadounidense George Reber Wieland excavó un esqueleto casi completo (Número de espécimen: YPM 3000, longitud total 3,52 metros), aunque sin cráneo, de la formación de esquisto de Pierre expuesta a lo largo del río Cheyenne en el condado de Custer, Dakota del Sur. Al año siguiente, en 1896, Wieland describió esta tortuga marina gigante como un nuevo género y especie, "Archelon ischyros", en su documento "Archelon ischyros: a new gigantic cryptodire testudinate from the Fort Pierre Cretaceous of South Dakota". Además, en 1897, el propio Wieland descubrió un segundo espécimen que contenía un cráneo y una mandíbula inferior bien conservados (longitud total aprox. 3 metros) de estratos en la misma región, e informó estructuras detalladas del cráneo y la pelvis en un documento de 1900.
El espécimen tipo "YPM 3000" que sobrevivió con una pierna
El primer espécimen (Espécimen tipo: YPM 3000), albergado en el Museo Peabody de Historia Natural de Yale, tiene rastros vívidos que cuentan la historia de la feroz competencia por la supervivencia en los mares del Cretácico. En este esqueleto, la punta de la aleta trasera derecha falta por completo, y además, los huesos restantes de la pierna derecha muestran rastros de detención del crecimiento, deformación y curación de la herida (hipoplasia).
Esto prueba que el hueso no se perdió durante el proceso de fosilización. En cambio, cuando este individuo aún era joven, sufrió una lesión fatal: una ave marina, un mosasaurio o el pez gigante Xiphactinus (o tal vez aplastado por otro gran adulto en la playa de anidación) le arrancó de un mordisco la aleta trasera derecha. A pesar de esto, curó la herida y milagrosamente sobrevivió durante muchos años, creciendo hasta la edad adulta (3,52 metros) con solo una pata trasera. En Japón, se exhiben enormes réplicas completas del esqueleto de forma permanente en el Museo Nacional de Naturaleza y Ciencia y en el Museo de Dinosaurios de la Prefectura de Fukui. Además, se instaló una escultura reconstruida de tamaño natural en el Parque Marino de Kushimoto en la prefectura de Wakayama, lo que permite a los visitantes experimentar de cerca la abrumadora escala de Archelon, que sobrevivió a los mares antiguos.