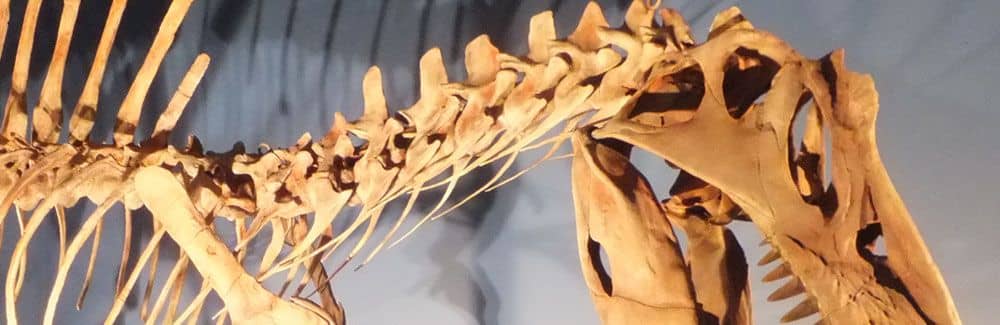
スピノサウルスとは
| 学名(属名) | Spinosaurus |
| 名前の意味 |
とげを持つトカゲ
spīna(棘)[ラテン語]-saurus(トカゲ)[ギリシャ語] |
| 分類 | 竜盤目・獣脚類(獣脚亜目・テタヌラ下目・メガロサウルス上科・スピノサウルス科) |
| 全長・体重 | 全長約13 - 15m(成体で14m以上) / 推定体重約7,400kg |
| 食性 | 魚食(水辺の多様な獲物も捕食する機会主義的捕食者) |
| 生息時期 | 白亜紀前期-後期(セノマニアン期、約9,350万年前に絶滅) |
| 下分類・種名 |
Spinosaurus aegyptiacus
Spinosaurus mirabilis Spinosaurus maroccanus (疑問名・同物異名の可能性) |
| 論文記載年 | 1915 |
| 記載論文 |
Ergebnisse der Forshungsreisen Prof. E. Stromers in den Wüsten Ägyptents.
Wirbeltier-Reste der Baharîe-Stufe(unterstes Cenoman) 3.Das Original des Theropoden Spinosaurus aegyptiacus, von Ernst Stromer, Vorgelegt am 6, Nov. 1915. |
特徴と進化:ヨーロッパからアフリカへ進出した巨大魚食恐竜
スピノサウルスは、成体になると全長14m以上、推定体重約7,400kg(7.4トン)に達した史上最大級の獣脚類です。背中にそびえ立つ最大1m〜2mもの巨大な帆(神経棘)と、細長い口(吻部)、そして真っ直ぐな円錐形の歯を持ち、水辺や浅瀬での魚食に高度に適応していました。第二次世界大戦での標本焼失という悲劇的な歴史から長らく「幻の恐竜」と呼ばれていましたが、近年の新発見と解析によって、その姿は他のどの恐竜よりも劇的に変化し続けています。
ヨーロッパ起源と2つの亜科への分岐

かつてスピノサウルス科の起源は謎に包まれていましたが、近年のイベリア半島(スペインやポルトガル)における相次ぐ化石発見により、その進化の道筋が明らかになってきました。白亜紀前期のヨーロッパには、バリオニクスをはじめ、イベロスピヌス、カマリラサウルス、ヴァリボナヴェナトリクス、プロタトリティス、リオハヴェナトリクスなど多様なスピノサウルス科が生息していたのです。
特にイベロスピヌスなどの化石からは、スピノサウルス科が進化のごく初期の段階からすでに水辺(半水生)の環境に適応していたことがわかっています。ヨーロッパの沿岸部やラグーン環境で誕生したこれらの仲間が、のちにアフリカ大陸(当時のゴンドワナ大陸北部)へと複数回にわたって進出し、そこでさらなる巨大化を遂げました。
スピノサウルス科は、頭骨や歯の特徴から「バリオニクス亜科」と「スピノサウルス亜科」の2つのグループに大きく分けられます。これは獲物のサイズや食べ方の違い、つまり生態系の中での役割分担(ニッチの分割)を反映しています。
| 形態の特徴 | バリオニクス亜科 (Baryonychinae) | スピノサウルス亜科 (Spinosaurinae) |
|---|---|---|
| 歯の構造 | 歯の縁に細かいギザギザ(鋸歯)があり、エナメル質の表面に葉脈のような模様がある。 | ギザギザ(鋸歯)が完全に退化・消失しており、滑らかな円錐形をしている。 |
| 歯の数 | 上顎に20本以上、下顎(歯骨)に25本以上と歯の数が多い。 | 歯の数が減少し、上顎は約12本、下顎は約15本になっている。 |
| 吻部と鼻の穴の位置 | 鼻の穴(外鼻孔)の後退は上顎の前半部にとどまる。 | 鼻の穴が頭骨のずっと後方へ退縮している。吻部の先端(ロゼット構造)の後ろに長い래(くびれ)を持つ。 |
このように、バリオニクス亜科の「肉を切り裂くギザギザの歯」からスピノサウルス亜科の「獲物を突き刺して逃さない滑らかな円錐形の歯」へと進化したことは、一般的な肉食から、魚類を主食としつつ水辺の多様な獲物を狙う生態へと進化していったことを示しています。
獲物を引き寄せる「手の鉤爪」と、泥の上を歩く「足の平らな爪」
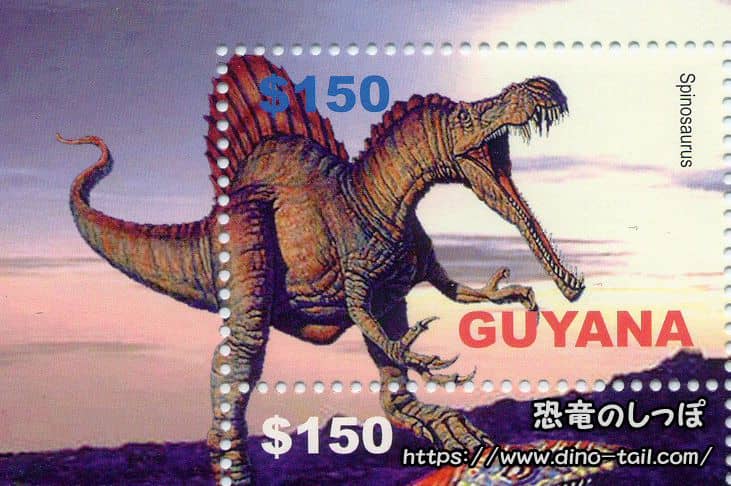
スピノサウルスの前脚は肩から先ががっしりとしており、親指(第I指)には巨大な鉤爪(かぎづめ)が備わっていました。生体力学的な解析(テコの原理を用いたモデル)によると、この巨大な手の爪は獲物の肉を切り裂くためではなく、顎だけでは押さえきれない暴れる大型の魚などに深く引っ掛け、力強く引き寄せて固定する「フック」の役割を果たしていたと考えられています。
一方、後脚の爪(足の爪)は手の爪とは正反対の特徴を持っていました。2018年、モロッコのケムケム層群から長さわずか21mmという極めて小さな足の爪の化石(標本番号:MSNM V6894)が報告されました。これは成体になると14mを超えるスピノサウルスの、推定全長わずか1.78mという幼体(子ども)の化石です。
驚くべきことに、この子どもの足の爪は、成体の爪(長さ130mm)とまったく同じように「底面が平らで幅が広い」という形をしていました。通常の肉食恐竜の足の爪が強く湾曲しているのに対し、スピノサウルスの平らな爪と幅広の足は、泥や柔らかい堆積物の上で体重を分散させて沈み込まずに歩く役割や、水かき(パドリング)を補助する役割を果たしていました。
子どもの頃から大人になるまで、体のパーツの比率を変えずにそのまま大きくなる成長様式を「等長成長」と呼びます。全長1.78mの幼体化石の表面には、現生の鳥類やワニの子どもにも見られる急激な骨形成を示す無数の小さな孔(栄養孔)が確認されました。スピノサウルスは孵化して間もない早い段階から、大人と同じように水辺の柔らかい泥の上を歩く生活に適応し、S字カーブを描くような成長過程を経て巨体へと育っていったことが証明されています。
頭部と顎の秘密:水中の獲物を逃さないセンサーと力学構造
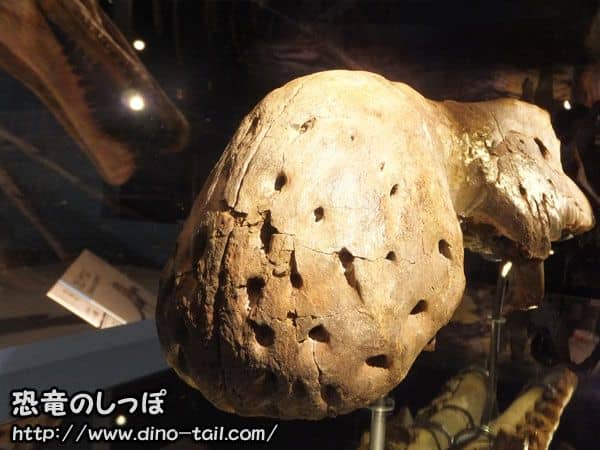
吻部の先端にはたくさんの穴があいています。
食物となる魚を感知するセンサーの役割を果たしていました。
スピノサウルスの頭骨は、ティラノサウルスやカルカロドントサウルスなどの他の大型獣脚類とは大きく異なる独自の進化を遂げています。その吻部は非常に細長いですが、現生のワニのように上下に平べったいのではなく、左右から押しつぶされたように縦に扁平な構造をしています。
さらに、上顎と下顎の先端はスプーンのように少し横に広がり、そこに巨大な歯が集中する「ロゼット」と呼ばれる構造を作っています。上顎のロゼットのすぐ後ろには深い切れ込み(くぼみ)があり、口を閉じたときには下顎の広がった先端の歯がこのくぼみにピタリと噛み合う仕組みになっていました。この顎の形は、現生のインドガビアルやアフリカクチナガワニだけでなく、三畳紀の水生爬虫類である「植竜類(フィトサウルス類)」や、現生の熱帯魚である「ハモ科のウナギ」の顎とも驚くほどよく似ています。
系統がまったく異なる生き物同士が、同じような環境や生活スタイルに適応した結果、よく似た体の形に進化する現象を「収斂進化」と呼びます。スピノサウルスのロゼット構造の顎は、「暗く視界の悪い水中で、滑りやすく素早く動く魚を確実に捕らえる」という共通の課題に対して、進化が導き出した究極の答えでした。
また、CTスキャンとコンピュータ上の力学シミュレーション(有限要素解析)を用いた研究により、スピノサウルスの細長い吻部は、その華奢な見た目に反して、同じ大きさの現生ワニ類と同等以上の「曲げ」や「ねじれ」に対する強さを備えていたことが判明しました。ティラノサウルスのように獲物の骨ごと噛み砕くような強大な噛む力(咬合力)は持っていなかったものの、顎を素早く閉じて円錐形の歯を獲物に深く突き刺し、暴れる獲物のねじれの力に耐えて喉の奥へと押し込む機能に特化していたのです。
さらに注目すべきは、吻部の先端に開いた無数の小さな穴(神経血管孔)です。頭骨内部をCTスキャンで調べた結果、この穴の奥には「三叉神経(さんさしんけい)」につながる極めて複雑で高度な神経と血管のネットワークが張り巡らされていたことがわかりました。スピノサウルスは、後ろに下がった鼻の穴を水面に出して呼吸を続けながら、吻部の先端だけを濁った水中に突っ込み、魚が泳ぐことで生じるわずかな水圧の変化をこの高感度センサーで察知して狩りを行っていました。
論争の最前線:水中を泳ぐ恐竜か、浅瀬の待ち伏せハンターか
スピノサウルスが「どの程度まで水中の生活に適応していたのか」という問題は、2014年以降、現代の古生物学において最も白熱した議論が交わされているテーマのひとつです。次々と発表される新発見と物理学的な反証により、その復元像は「完全水生の追跡型捕食者」モデルと、「浅瀬を歩いて獲物を狙う(サギ型)」モデルの間で大きく揺れ動いてきました。
2014年〜2022年:「水中追跡型捕食者」仮説の展開
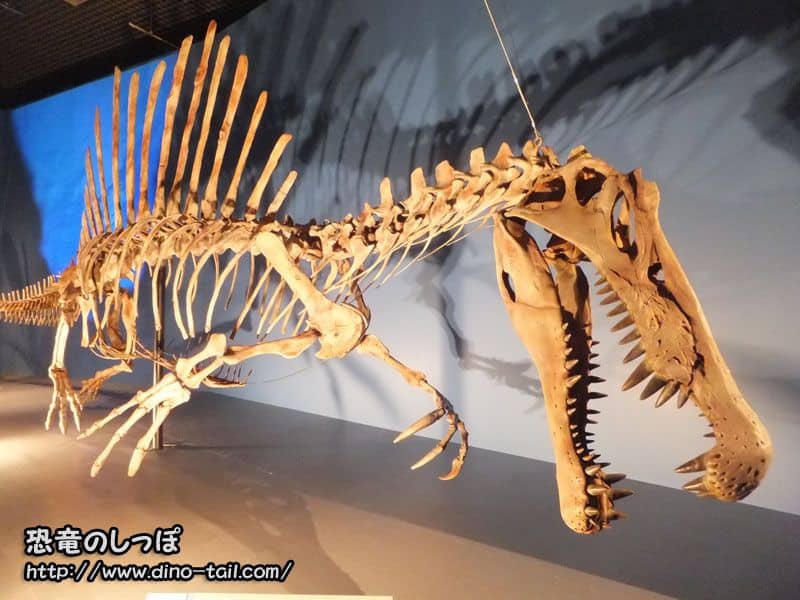
2014年、ニザール・イブラヒム博士らの研究チームは、モロッコで新たに発見された骨格標本(ネオタイプ標本:FSAC-KK 11888)を分析し、スピノサウルスの後脚が他の大型獣脚類に比べて極端に短いことを発表しました。また、体の重心が腰(骨盤)よりもはるかに前方に位置していたと計算し、陸上では二足歩行ができず四足歩行を強いられていたと推測しました。さらに、手足の骨の内部に空洞(髄腔)がなく高密度に詰まっている点から、ペンギンやマナティーのように浮力を抑えて潜水するための適応であると主張しました。
さらに2020年、同じ標本の尾の化石が発表されると世界中に衝撃が走りました。スピノサウルスの尾は他の恐竜のような細長い棒状ではなく、上下に長い棘(神経棘と血道弓)が並んだ、巨大な「パドル(櫂)状のヒレ」のような形をしていたのです。研究チームが尾の形を模したプラスチックモデルをロボット装置に取り付けて水流実験を行ったところ、他の陸上恐竜の尾よりもはるかに高い推進力を生み出すことが示され、ワニやイモリのように尾を左右に振って水中を泳ぎ、魚を積極的に追いかける「水中追跡型捕食者」であったと提唱されました。
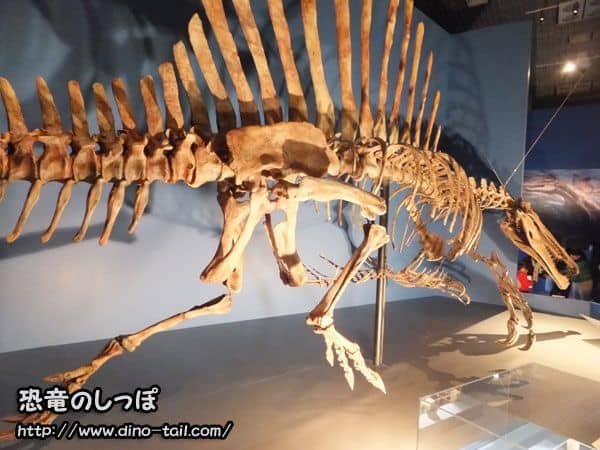
短い後脚
続いて2022年には、マッテオ・ファブリ博士らが現生および絶滅した脊椎動物250種以上の大腿骨や肋骨の緻密さ(骨密度)をCTスキャン等で比較し、スピノサウルスやバリオニクスの骨密度が水中に潜って餌を採る動物と完全に一致すると報告し、水中潜水説をさらに補強します。
生体力学的反証:浮きすぎて潜れない?「浅瀬のサギ型」モデル
しかし、この「水中を自在に潜水して泳ぎ回る恐竜」というセンセーショナルな仮説に対し、別の研究グループから物理学・生体力学に基づく強力な反証が突きつけられました。
2021年、デイヴィッド・ホーン博士とトーマス・ホルツ博士は、スピノサウルスの尾の筋肉量がワニに比べて圧倒的に少なく、巨大な体と背中の帆が水中で極めて大きな水の抵抗(抗力)を生むため、素早く泳ぐ魚を水中で追いかけることは流体力学的に不可能であると指摘しました。そして2022年、シカゴ大学のポール・セレノ教授らの研究チームが、CTスキャンに基づく精密な骨格データに筋肉や内臓、さらには肺や気嚢(空気の袋)の容積を組み込んだ「3Dデジタル肉付けモデル」を作成し、検証結果を発表しました。
| 検証項目 | 水中追跡型捕食者説 (Ibrahimら 2014, 2020 / Fabbriら 2022) |
浅瀬徘徊(サギ型)説 (Hone & Holtz 2021 / Serenoら 2022) |
|---|---|---|
| 重心と陸上の歩行 | 重心が胴体の中央にあり、陸上では後脚で立てず四足歩行が必須だった。 | 2014年の研究で過小評価されていた「肺や気嚢の空間」を正しく計算した結果、重心は腰(後脚)の上にあり、陸上では完全に二足歩行が可能だった。 |
| 浮力と潜水能力 | 中まで詰まった高密度の骨が「重り(バラスト)」となり、深く潜水して獲物を追跡できた。 | 推定体重約7,400kgに対し、巨大な肺と気嚢の空気によって体全体の密度が海水を大幅に下回るため、浮力が強すぎて水中に沈むことができない(潜水不可能)。 |
| 泳ぐ能力と安定性 | パドル状の尾を振ることで、水中で強力な推進力を得ていた。 | 水の抵抗が大きすぎ、水面でも秒速1m未満の遅い速度でしか泳げない。足がつかない深さでは巨大な背中の帆が傾き、横転(転覆)しやすく極めて不安定になる。 |
| 重い骨(高密度骨)の理由 | 水中に潜る水生動物特有の「浮力を抑えるための適応」である。 | 短い後脚で7トンを超える巨体を陸上で支えるため、骨の壁を厚くして折れにくくした「陸上での力学的な補強」である(陸生傾向の強い近縁種スコミムスも同様に高密度な骨を持つ)。 |
さらにセレノ教授らは、化石が見つかる場所(地理的分布)も根拠に挙げています。クジラやアザラシのような海洋動物が狭い淡水河川の奥深くまで入り込んで生活することはありませんが、スピノサウルスの化石は沿岸部だけでなく、海岸線から遠く離れたニジェールの内陸盆地のような淡水環境でも多数発見されています。
2026年2月には、セレノ教授らのチームによってニジェールの内陸河川層から高さ約50cmの曲刀状のトサカを持つ新種スピノサウルス・ミラビリス(Spinosaurus mirabilis)も報告されており、これらの証拠から、スピノサウルスは水中を高速で泳ぎ回るのではなく、現代の巨大なサギ(ヘロン)やコウノトリのように「水深2m以上の浅瀬にも立ち込み、水面上から長い首と吻部を突き出して魚を待ち伏せ・捕食する半水生のハンター(浅瀬徘徊モデル/ヘル・ヘロンモデル)」であったという説が支持されています。
背中の帆の役割と、環境激変による絶滅の謎
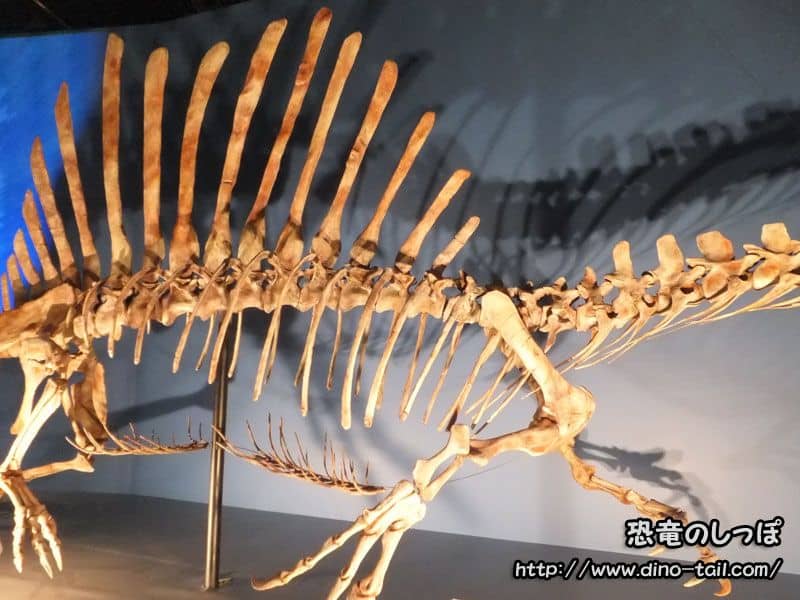
帆(神経棘)の役割:「体温調節」や「ヒレ」ではなく「巨大な看板」
スピノサウルスの最大のシンボルである背中の帆(長く伸びた神経棘)については、かつて装盾類ステゴサウルスの背板と同じように「体温調節」の役割を果たしていたと考えられていました。しかし、帆の骨の表面や断面を詳しく調べた結果、熱を交換するための血管の跡がほとんど見られなかったことから、現在では体温調節説は否定されています。
また、水中での姿勢を安定させる背ビレのような役割も提唱されましたが、前述の流体力学シミュレーションによって、水中に潜ると帆が大きな抵抗がかかり転覆の原因になることが判明しました。そのため現在では、背中の巨大な帆も、パドルのように広がった尾のヒレも、水辺の開けた環境において遠くから仲間に自分の存在や大きさを誇示し、縄張り争いや異性へのアピールを行うための「視覚的なディスプレイ」として進化したという説が最も有力視されています。
なぜ白亜紀の途中で姿を消したのか?
白亜紀中頃の北アフリカにおいて、陸上の巨大肉食恐竜カルカロドントサウルスなどと住み分け(ニッチの分割)を行い、水辺の頂点捕食者として繁栄を極めたスピノサウルス類ですが、白亜紀後期セノマニアン期の終わり(約9,350万年前)を境に、化石記録から突如として姿を消してしまいます(※白亜紀末まで生き残ったとする一部の不確実な説は、現在では証拠不十分として否定されています)。
この突然の絶滅は、「セノマニアンーチューロニアン境界事変(第2次海洋無酸素事変:OAE 2)」と呼ばれる地球規模の急激な環境変動と時期が一致しています。当時、地球は極端な温暖化(白亜紀の熱極大期)に見舞われ、海面が急激に上昇(海進)したのち、一転して急激に低下(海退)する激しい変動が起こりました。
スピノサウルス類は、広大なデルタ(三角州)地帯やマングローブ林、網の目のように広がる河川やラグーンといった「水が豊かで複雑な水辺の生態系」に特化して進化していました。特定の環境に特殊化しすぎた生き物は、環境が安定している間は無類の強さを発揮しますが、急激な海面変動によって生息地そのものが失われると生き延びることができません。結果として、より幅広い陸上環境に適応できた他の肉食恐竜たちよりも早く、スピノサウルス類は地球の舞台から退場することになったのです。
発見と喪失の歴史:空襲に消えた化石と分類の謎
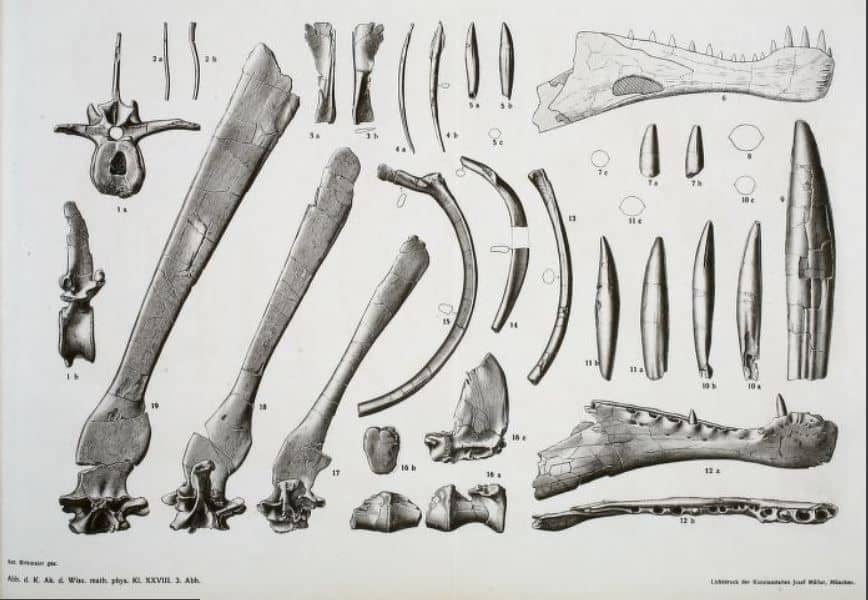
出典:Ergebnisse der Forshungsreisen Prof. E. Stromers in den Wüsten Ägyptents. Wirbeltier-Reste der Baharîe-Stufe(unterstes Cenoman) 3.Das Original des Theropoden Spinosaurus aegyptiacus, von Ernst Stromer, Vorgelegt am 6, Nov. 1915.
エジプト砂漠での大発見と「スピノサウルス B」
スピノサウルスの研究史は、数奇な運命と悲劇に彩られています。1910年、ドイツの貴族であり古生物学者であったエルンスト・シュトローマー(Ernst Stromer)は、エジプトの砂漠地帯への探検に出発しました。乗船していた蒸気船でのコレラ発生による隔離措置などの困難を乗り越え、カイロの南西約320kmにあるバハリヤ・オアシスの調査を開始します。
1912年の秋、シュトローマーから資金提供を受けていた化石収集家リヒャルト・マルクグラーフ(Richard Markgraf)によって、白亜紀後期セノマニアン期の地層から未知の巨大な獣脚類の骨格(標本番号:BSP 1912 VIII 19)が発掘されました。細長い下顎、真っ直ぐな円錐形の歯、そして1mを超える長大な背中の棘突起を含むこの化石を、シュトローマーは1915年に「エジプトの棘を持つトカゲ」を意味する新属新種スピノサウルス・アエギュプティアクス(Spinosaurus aegyptiacus)として発表しました。
さらに1914年にはマルクグラーフによって2体目の部分骨格(IPHG 1922 X45)も発掘されましたが、第一次世界大戦の勃発によってエジプトで足止めされてしまいます。1916年のマルクグラーフの死を経て、1922年にようやくドイツへ届けられた化石は度重なる輸送で激しく破損していたものの、シュトローマーは1934年にこれを「スピノサウルス B」として記載し、1936年には全身骨格の復元図を公表しました。
第二次世界大戦の悲劇:却下された疎開要請とミュンヘン空襲
しかし、第二次世界大戦がスピノサウルスの研究に壊滅的な打撃を与えます。シュトローマーのエジプト産化石コレクションは、ミュンヘンのバイエルン州立古生物学コレクションに保管されていました。当時、ナチス政権に対して批判的な立場をとっていたシュトローマーは、激化する空襲の危険から貴重な化石を岩塩坑などの安全な場所へ疎開(避難)させるよう、博物館長であったカール・ボイレン(Karl Beurlen)に何度も懇願しました。
ところが、熱心なナチス支持者であり「ドイツ空軍が都市を守り抜く」と信じていたボイレン館長は、シュトローマーの要請を却下し続けました。その結果、1944年4月24日から25日にかけての夜間に行われたイギリス王立空軍(RAF)のミュンヘン爆撃によって博物館は直撃弾を受け、スピノサウルスの模式標本を含むすべての化石が完全に焼失してしまったのです。2人の息子を戦線で失い、もう1人の息子もソ連の収容所に奪われていたシュトローマーにとって、これは生涯の学術的成果のすべてを失う悲劇でした。その後、1995年に奇跡的に生還していた息子のヴォルフガングが数枚の記録写真を博物館に寄贈するまで、スピノサウルスは論文のスケッチのみに姿を留める存在となったのです。
ケムケム層群の化石と「シギルマッササウルス」を巡る分類論争
1990年代以降、モロッコのケムケム層群(Kem Kem Group)からスピノサウルス類の化石が再び発見されるようになりました。1996年、古生物学者デイル・ラッセルは、この地域から見つかった横幅が非常に広い特徴的な頸椎(首の骨)をもとに、新種「スピノサウルス・マロッカヌス(Spinosaurus maroccanus)」と、別属の新種「シギルマッササウルス(Sigilmassasaurus brevicollis)」を記載しました。
それ以来、北アフリカのケムケム層群に生息していたスピノサウルス類が「実はすべて単一の種(Spinosaurus aegyptiacus)であり、シギルマッササウルスやマロッカヌス、さらにはブラジルのオキサライアも同種(シノニム)である」とする単一種仮説(イブラヒム博士やスミス博士ら)と、「首の骨の突起や構造の違いは個体差や成長段階では説明できず、シギルマッササウルスなどの別属・別種が複数共存していた」とする複数種仮説(エヴァース博士ら)の間で激しい議論が続いています。
生物が死んでから化石になるまでの過程を「タフォノミー」と呼びます。モロッコのケムケム層群では、スピノサウルスの歯の化石は大量に見つかり安価に流通するほどですが、骨格のほとんどは当時の激しい川の流れで運ばれ、バラバラに離れた状態で見つかります。関節が繋がった完全な全身骨格が複数見つからない限り、骨の形の違いが「別の種類だから」なのか、それとも同じ種類の中での「年齢・性別の違い、あるいは首の骨の順番の違い」なのかを完全に証明することが非常に難しいのです。