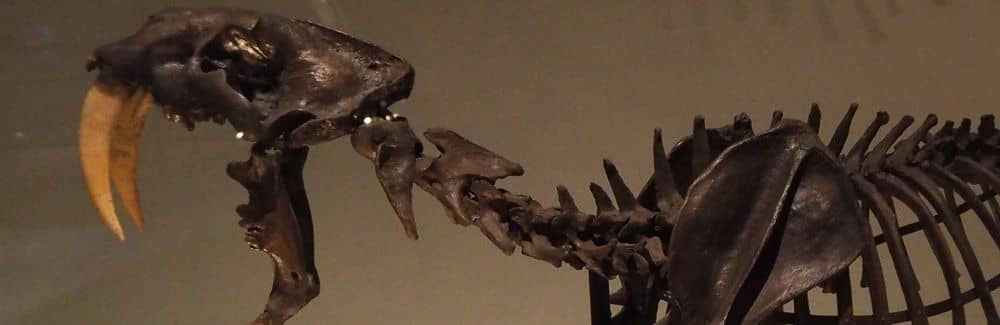
スミロドン(サーベルタイガー)とは
| 学名(属名) | Smilodon |
| 名前の意味 |
ナイフのような歯
smilē(両刃のナイフ・彫刻刀)[古代ギリシャ語]-odōn(歯)[古代ギリシャ語] |
| 分類 | 食肉目(ネコ目)ネコ科マカイロドゥス亜科スミロドン族 |
| 体格 | 体長 約1.75m / 肩高 約1.0 - 1.2m / 推定体重 55 - 436kg (最大推定470kg、種により異なる) |
| 食性 | 肉食 |
| 生息時期 | 新生代第四紀更新世初期 - 完新世初頭 (約250万 - 1万年前) |
| 下分類・種名 |
Smilodon gracilis (スミロドン・グラキリス)
Smilodon fatalis (スミロドン・ファタリス) Smilodon populator (スミロドン・ポプラトル) ※カリフォルニア州ラ・ブレアの個体群を Smilodon californicus として独立させる説もあります |
| 論文記載年 | 1842年 (ペーテル・ヴィルヘルム・ルンド) |
スミロドンは、更新世初期から完新世初頭(約250万年前〜約1万年前)にかけて南北アメリカ大陸の生態系の頂点に君臨した絶滅捕食者です。属名の「スミロドン(Smilodon)」は、1842年にデンマークの博物学者ペーテル・ヴィルヘルム・ルンドが、ブラジルのラゴア・サンタ地域の洞窟堆積物から発見された化石をもとに命名したもので、古代ギリシャ語の「両刃のナイフ・彫刻刀(smilē)」と「歯(odōn)」を組み合わせて「ナイフのような歯」を意味しています。
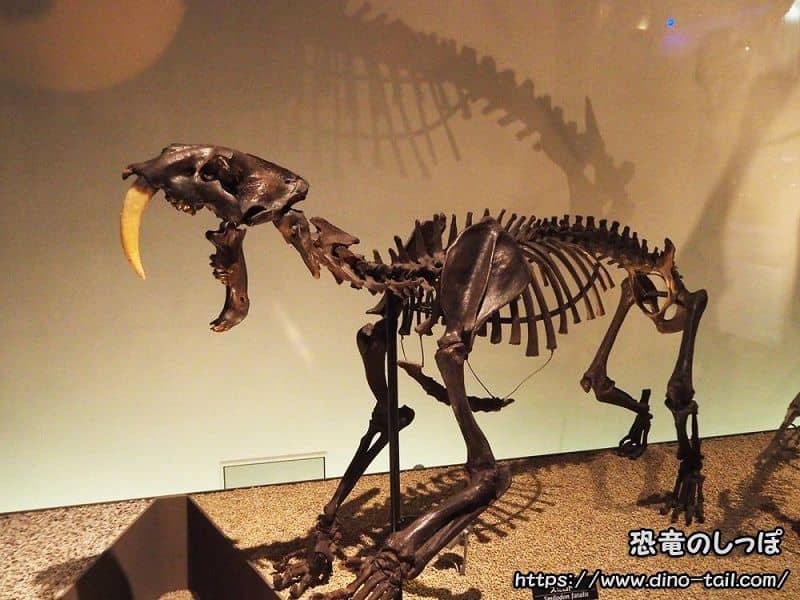
一般的には「サーベルタイガー(剣歯虎)」という俗称で広く知られていますが、分類学上は現在のトラやライオンが属する「ヒョウ亜科」とも、ピューマやイエネコが属する「ネコ亜科」とも異なる、独立した絶滅系統である「マカイロドゥス亜科」に属しています。マカイロドゥス亜科は現生のネコ科動物が枝分かれするよりもはるかに古い時代にネコ科の基部から分岐しており、いかなる現生ネコ科動物の直接の祖先でもありません。そのため、科学的に正確な一般名称としては「剣歯猫(サーベルキャット)」と呼ぶのが妥当とされています。
マカイロドゥス亜科の2つのタイプ(生態形態群)
剣歯猫の仲間(マカイロドゥス亜科)は、牙や体型の進化の方向性から大きく2つのグループに分けられます。一つはホモテリウムに代表される「三日月刀歯型(シミター歯型)」で、比較的短く幅広で粗いギザギザを持つ犬歯と、開けた環境で獲物を長距離追跡するのに適した細長い四肢を備えていました。もう一つが、スミロドンやその祖先のメガンテレオンに代表される「短剣歯型(ダーク歯型)」です。短剣歯型は非常に長く扁平で細かいギザギザを持つ犬歯と、太く頑丈で筋肉質な四肢、短い腰と尾を持ち、茂みなどに隠れての待ち伏せと大型獣の組み伏せに特化していました。
スミロドンの特徴:氷河期のパワーファイターと3つの種
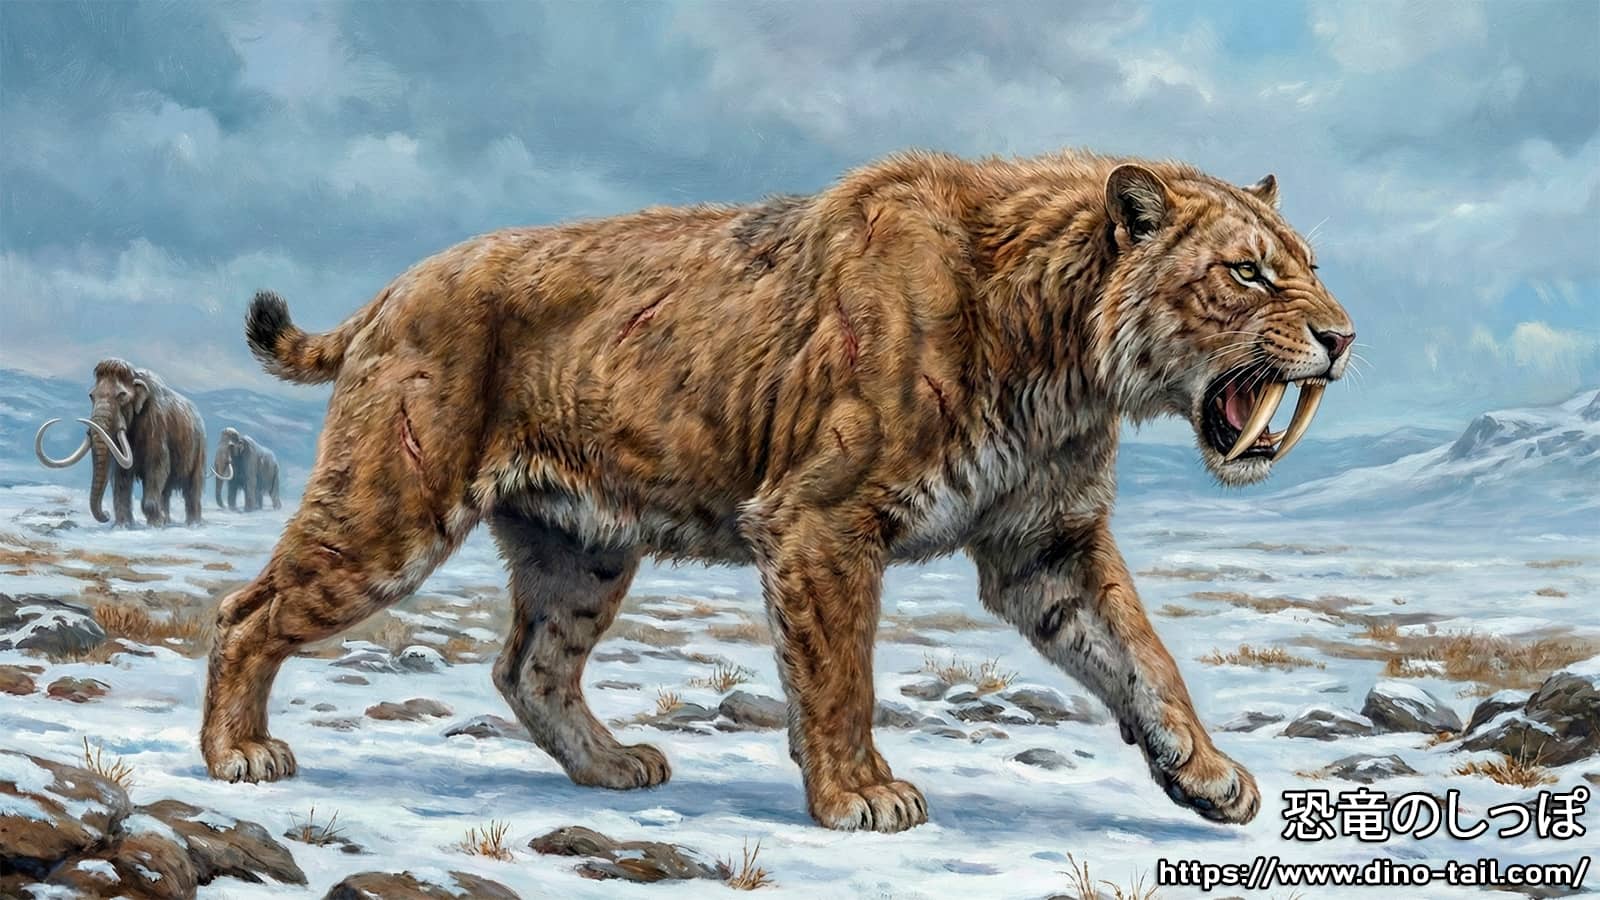
(Gemini_Generated_image,2026.)
スミロドンは、ユーラシアからベーリング陸橋を渡って北米へ進入していたメガンテレオンから進化したと考えられています。スミロドンの骨格は現生のライオンよりも太くがっしりとしており、高い跳躍力を示す長い踵(かかと)の骨と短縮した腰椎を持っていました。これは、彼らが俊敏な長距離追跡者ではなく、茂みなどの遮蔽物から飛びかかって大型の獲物を力づくで地面にねじ伏せる、待ち伏せ型のパワーファイターであったことを示しています。
時代と地域で異なる3つの有効種
スミロドンには化石ごとの体格差が大きいため、かつては多くの種名が乱立したり、更新世後期の種を1つにまとめたりする議論がありましたが、頭蓋骨の形状や四肢のプロポーションの詳細な統計解析により、現在では時代や分布、体格が異なる以下の3つの有効種が広く認められています。
| 種名 | 生息年代 | 主な地理的分布 | 推定体重・形態的特徴 |
|---|---|---|---|
|
スミロドン・グラキリス
(Smilodon gracilis) 「ほっそりした」の意 |
約250万年前〜50万年前 | 北米(主に米国東部・フロリダなど)および南米北部(ベネズエラ) | 体重55〜100kg。現生のジャガーと同等の体格を持つ最も初期の小型種。祖先のメガンテレオンに似ていますが、頭蓋や歯列がより進化しており、時代が下るにつれて大型化しました。 |
|
スミロドン・ファタリス
(Smilodon fatalis) 「致命的な」の意 |
約160万年前〜1万年前 | 北米全域、南米アンデス山脈以西(ペルー・エクアドル)、およびウルグアイ | 体重160〜280kg、肩高約100cm、体長約175cm。体長は現生ライオン並みですが、骨格がはるかに太く筋肉質。間氷期などの温暖な時期に大型化する傾向がありました。 |
|
スミロドン・ポプラトル
(Smilodon populator) 「破壊者・略奪者」の意 |
約100万年前〜1万年前 | 南米アンデス山脈以東(ブラジル・アルゼンチン・ウルグアイ)およびチリ南部 | 体重220〜436kg(最大推定470kg)、肩高約120cm、犬歯長は歯根を含め最大約28cm。史上最大級のマカイロドゥス亜科で、前あしが後ろあしに対して非常に長い体型をしていました。 |
南米の大型種スミロドン・ポプラトルについては、2020年にウルグアイ南部から全長約40cmに達する大きな頭蓋骨が記載され、体重が最大436kg - 約470kgに達していたことが明らかになりました。この巨体は、体重1トン〜3トンにおよぶ南米の超大型植物食獣を狩るための適応と考えられます。一方で、ブラジルの洞窟などからは栄養不良や病気の痕跡がないにもかかわらず推定体重が157〜171kgにとどまる小さな成体の化石も見つかっており、更新世末期の地域の環境に応じた小型化や、未知の亜種が存在した可能性も指摘されています。
南北アメリカ大陸への広がりの新展開
長らく古生物学界では、北米から南米へ進出したスミロドンはアンデス山脈を境界にして地理的に隔離され、アンデス以西の太平洋岸にファタリス、アンデス以東の広大な草原やサバンナにポプラトルが住み分けていたというモデルが定説とされてきました。
しかし、2010年代から2020年代半ばにかけての発見により、この定説は大きく塗り替えられます。初期のグラキリスがすでに南米北部のベネズエラに到達していたことや、ポプラトルがアンデス山脈の西側・南端にあたるチリ南部の洞窟にも分布していたことが判明したほか、2018年と2025年にはアンデス山脈の遥か東側にあたる大西洋岸のウルグアイからファタリスの頭蓋骨化石が相次いで報告されたのです。古気候の分析によると、ファタリスとポプラトルは好む気候や植生が異なっており、氷期と間氷期の気候サイクルに伴う生息域の変化によって直接的な競合を避けていた可能性が高いと考えられています。
アメリカ大陸間大交差(GABI)とは?
新生代の新第三紀鮮新世後期にパナマ地峡が形成され、それまで海で隔てられていた北アメリカ大陸と南アメリカ大陸が陸続きになったことで起きた、大規模な生物の移住現象(Great American Biotic Interchange)のことです。スミロドンの南米への進出もこの現象と連動していましたが、最新の研究から、一度きりの移住ではなく、更新世を通じて複数回の波状的な南下が起きていたことが分かってきました。
天然の落とし穴:ラ・ブレア・タールピットと社会性の謎
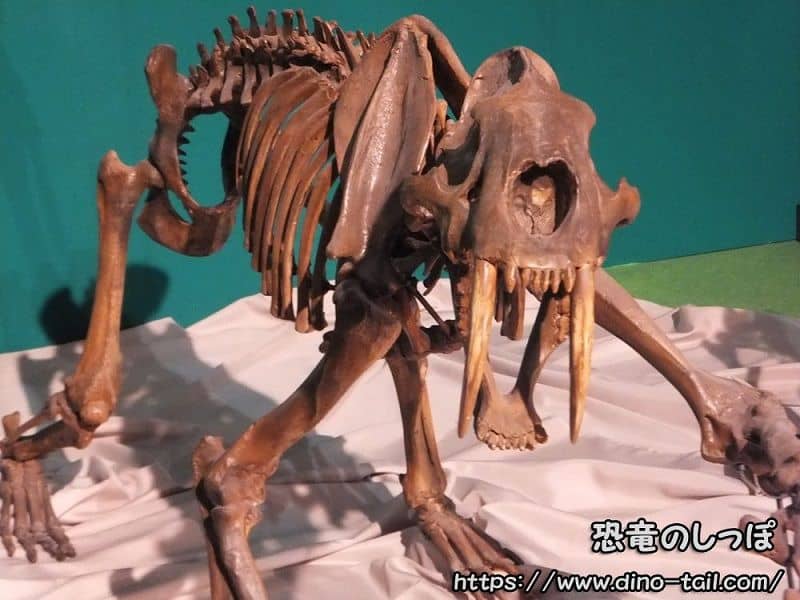
スミロドンの生態や怪我の痕跡が詳しく分かっているのには、ある特別な理由があります。アメリカ・ロサンゼルスの中心部に今も存在する「ラ・ブレア・タールピット(ランチョ・ラ・ブレア)」から、2,000個体分を超えるスミロドン・ファタリスの化石が発見されているためです(これは同地で見つかったダイアウルフに次いで2番目に多い哺乳類化石です)。
ここは地面から天然のアスファルト(タール)が染み出している場所で、氷河期の昔から、水たまりと間違えて足を踏み入れた動物たちが抜け出せなくなる「天然の落とし穴」でした。動けなくなったマンモスやバイソンといった大型植物食獣の助けを求める声に引き寄せられ、それを捕食しようとしたスミロドンもまた、次々とタールの罠にはまっていったのです。
仲間を思いやる社会性をめぐる科学的論争
現生のネコ科動物で群れを作って協同で狩りをするのはアフリカライオンだけであり、他のほぼすべての種は単独で生活しています。そのため、スミロドンが群れで生活し、負傷した仲間を養う社会性を持っていたかどうかは、古生物学で激しい論争が交わされてきたテーマの一つです。
かつて2003年には、「スミロドンは単独生活者だった」とする有力な反論が唱えられました。頭蓋骨の内側から復元した脳の形(特に前頭葉の割合)がライオンより小さく単独生活のネコ科に近いことや、ネコ科動物は体脂肪の蓄えによって絶食状態でも驚異的な骨の自然治癒力を発揮すること、さらに負傷した個体が生き延びてタールピットで死んだのは「自力で水場まで歩いて水を飲めるだけの運動能力が残っていた証拠」であり、仲間の助けを前提とする必要はないと主張されたのです。
しかし、2010年代後半から2020年代にかけて高解像度X線CTスキャンや獣医古病理学の研究によって、スミロドンが家族や仲間で支え合う社会性を持っていたことを示す決定的な証拠が再び提示されました。
まず、2017年に数千点におよぶ骨格の怪我(外傷)を調査した研究では、群れで獲物を追い詰めるダイアウルフの外傷率が2.8%だったのに対し、スミロドンは4.3%と有意に高く、特に巨大な獲物に飛びかかって地面にねじ伏せる際に過度の負荷がかかる「腰椎(腰の骨)」と「肩」に怪我が集中していたことが分かりました。そして2021年、長らく「大人になってから狩りの最中に負った大怪我の治癒痕」と考えられてきた有名な骨盤と右大腿骨の化石(標本番号 LACMHC 131)を医療用CTスキャンで非破壊検査した結果、この病変は後天的な怪我ではなく、生まれつきの「先天性股関節形成不全」とそれに伴う重度の慢性関節炎であったことが判明したのです。この個体は生後間もない子どもの頃から右後ろあしを正常に使えず、激しい痛みを抱えて自力で狩りをすることが物理的に不可能だったにもかかわらず、4〜5歳以上の成獣になるまで生き延びていました。幼少期から何年にもわたって自力で獲物を捕れない個体が成長できた事実は、体脂肪の蓄えだけでは説明がつかず、家族や群れの仲間が継続的に食べ物を分け与えていた強力な証拠となっています。
なお、スミロドンは頭蓋骨や犬歯のサイズにオスとメスの差(性的二形)がほとんどありません。このことから、彼らの群れはオス同士がハーレムを巡って激しく争う現生ライオンのような構造ではなく、ペアや血縁個体による平和的で協力的な家族単位の集まりであったと考えられています。
咆哮したのか、喉を鳴らしたのか?
社会的なコミュニケーションに関連して、スミロドンがどのような声を出していたのかという謎も2023年の研究で大きく前進しました。現生のネコ科動物は、喉の奥にある「舌骨(ぜっこつ)」という小さな骨の連なりが9個すべて骨になっているグループ(イエネコやピューマなど、ゴロゴロと喉を鳴らす種)と、一部が靭帯に置き換わって骨が7個になっているグループ(ライオンやトラなど、力強く咆哮する種)に分かれます。
ラ・ブレア・タールピットから見つかったスミロドンの舌骨は7個であったため、以前は当然ライオンのように吠えていたと考えられていました。ところが、105点におよぶ舌骨標本を詳しく比較解析した結果、声帯や発声器官に最も近い位置にある骨(甲状舌骨や底舌骨)の形状は、7個という骨の数にもかかわらず「ゴロゴロと喉を鳴らす」ネコ亜科に酷似しており、しかもそのサイズは現生最大のトラやライオンの舌骨よりもはるかに巨大で頑丈であることが判明しました。この独特な構造から、スミロドンは現生のライオンやトラよりもさらに低い「超低周波の重低音」でゴロゴロと喉を鳴らしていたか、あるいは現生のいかなるネコ科動物とも異なる独自の重低音の轟音を発していた可能性が高いと結論付けられています。
サーベルタイガー - スミロドンの捕食メカニズムと食性
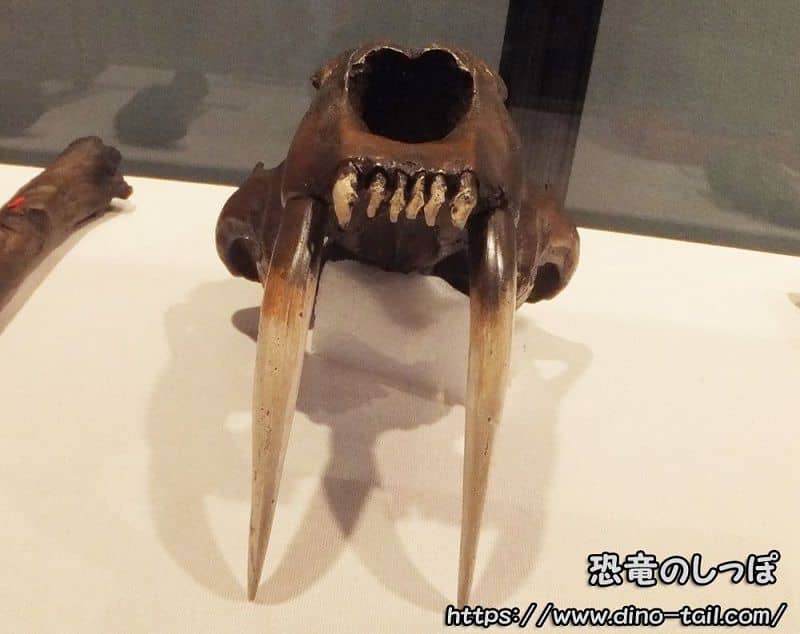
スミロドンの最大の特徴である上顎の犬歯は、左右に平たい楕円形の断面をしており、前後の縁には肉を切り裂くための細かいノコギリ状のギザギザ(鋸歯)が刻まれていました。この長い犬歯を獲物に突き立てるため、現生の大型ネコ科動物が65〜70度程度しか口を開けられないのに対し、スミロドンは下顎を約120度まで大きく開くことができました。
しかし、120度もの大開口を可能にするため、下顎の筋肉がつく突起(筋突起)が低く退化し、顎関節の位置が下方にシフトしていました。その結果、顎を閉じる筋肉だけで噛む力は体重の割に著しく弱く、最も力が入る15度の浅い角度でも約1,408ニュートン、最大開口時では約519ニュートンと、体重がはるかに軽い現生のヒョウと同程度の力しか出せませんでした。さらに、平たいナイフのような犬歯は前後の力には強いものの、左右(横方向)の曲げ応力には非常に脆く、暴れる獲物の硬い骨に当たれば簡単に折れてしまう構造上のリスクを抱えていました。そのため、上顎の前歯(切歯)が鋭く前方へ突き出してアーチ状に並び、噛みつく際に獲物の皮膚や肉を押さえ込んで、犬歯に横方向のねじれが加わるのを防ぐスタビライザーの役割を果たしていました。
首と前あしを連動させた必殺の一撃
かつては、上下の顎を強く噛み合わせることができないため死肉漁り(腐肉食者)であったとする説や、頭を振り下ろして単純に牙を突き刺していたとする説もありましたが、これらは歯の破損リスクや骨格の構造と矛盾するため現在では否定されています。
現在広く支持されているのは、顎の筋肉だけに頼るのではなく、極度に発達した首の筋肉や強靭な前あしを連動させて噛みつくメカニズムです。まず強靭な前あしで大型の獲物を地面に押さえつけて動きを封じ、開いた顎を喉元などの柔らかい部位に押し当てます。そこから下顎の歯をアンカー(固定点)として、首を下方に引く強大な筋肉で頭蓋骨全体を前方かつ下方へと回転させたり、あるいは前あしと首を持ち上げる力を利用して湾曲した犬歯の「円弧の軌道」にぴったり沿うように頭を回転させたりすることで、犬歯に無理な曲げ応力をかけることなく最大3,388ニュートンもの貫通力を発揮し、頸動脈や気管を切断して失血死させていたのです。
てこの原理を使った2つの咬合(こうごう)モデル
スミロドンの噛みつき方については、1985年に提唱された、首の付け根の関節を支点として首の筋肉で頭を回転させる「犬歯剪断咬合(けんしせんだんこうごう)モデル(第3種てこ)」が標準的とされてきました。さらに2014年には、実物大の機械装置(ロボキャット)による実験などを踏まえ、前あしで獲物を押さえつけながら、湾曲した犬歯が描く円の中心(仮想中心)を支点として頭を回転させることで、犬歯の折損リスクを最小限に抑えて滑るように貫通させる「第1種てこモデル」も提唱されています。
11ヶ月間も並んでいた「乳歯と永久歯」
この精巧で折れやすい犬歯は、子どもの成長過程でユニークな戦略をとっていました。歯のエナメル質に残された酸素同位体(季節ごとの気温変化の記録)やCTスキャンの分析から、永久犬歯は1ヶ月に約7mmというトラ並みの速い成長スピードと、約18ヶ月というライオン並みの長い成長期間を組み合わせて作られていたことが判明しています。
永久犬歯が生え始めた後も子どもの歯(乳犬歯)はすぐには抜け落ちず、約11ヶ月間もの長期にわたって乳犬歯と永久犬歯が左右にぴったり並んで共存し続けていました。これは、まだ薄くて折れやすい成長途中の永久犬歯を、隣り合う乳犬歯が物理的な「添え木(ガイド)」として保護するための進化でした。永久犬歯が完全に成長を終えるのは生後約3年(34〜38ヶ月齢)になってからであり、若年個体が成獣と同じ狩りを行えるようになるまでには約3年という長い養育・学習期間が必要でした。実際にラ・ブレア・タールピットでは、少なくとも2歳以上の若年個体2頭が母親とみられる成獣と同時に捕らえられた化石も見つかっています。
覆された「骨を避けていた」という定説
スミロドンが何をどのように食べていたのかについても、最新の科学技術によって従来の定説が覆されています。骨や歯の安定同位体分析や化石に残された歯型の調査から、北米のファタリスは森林や低木林の縁辺部に潜み、ジャイアント・バイソンやウエスタン・キャメル(ラクダ類)、地上性ナマケモノ、ウマ類などを主な獲物とし、開けた草原を好んだアメリカライオンと棲み分けていました。また、南米のポプラトルは森林とサバンナの双方で狩りを行い、トクソドン類や体重1.2トンを超えるマクラウケニア類、さらには巨大な地上性ナマケモノ(エレモテリウムやメガテリウム)の幼獣から成獣までを標的にしていました。
かつて1990年代の走査型電子顕微鏡を用いた研究では、スミロドンの奥歯(裂肉歯)に骨を噛んだ傷が少ないとされ、「犬歯が折れるのを恐れて骨との接触を徹底的に避け、まだ肉が残った死体を放置していた」と考えられていました。しかし2012年および2025年に、三次元レーザー顕微鏡を用いて歯の表面のミクロな傷を立体的に測定する手法で再解析したところ、スミロドンの奥歯の摩耗パターンは現生のアフリカライオンに近く、肉とともに軟骨や骨の一部も消費していたことが明らかになりました。また、スミロドンの犬歯の破折率(11.2%)は死体の骨をかじったせいではなく、生きている巨大な獲物を組み伏せる際の激しい格闘によって生じていたことも証明されています。
歯科微細摩耗テクスチャ解析(DMTA)とは?
歯の表面に残された目に見えないほど小さな傷(微細摩耗)を、共焦点レーザー顕微鏡で三次元的に計測する分析手法です。柔らかい肉を切り裂いたときにできる平行な擦り傷と、硬い骨を噛み砕いたときにできる複雑な窪みの割合を数値化することで、絶滅した動物が死ぬ直前の数週間〜数ヶ月間にどのような食べ物をどの程度食べていたのかを正確に復元できます。
氷河期の終わりと共に:絶滅の真相
更新世末期(約1万2,900年前〜1万年前)、スミロドンは南北アメリカ大陸の多くの大型動物と共に地球上から姿を消しました。その絶滅の原因をめぐっては、長年にわたり「ヤンガードリアス期(約1万2,900年前〜1万1,700年前)の急激な寒冷化によるもの」とする説と、「新たにアメリカ大陸へ広がった人類による過剰な狩猟(オーバーキル)によるもの」とする説が対立していました。
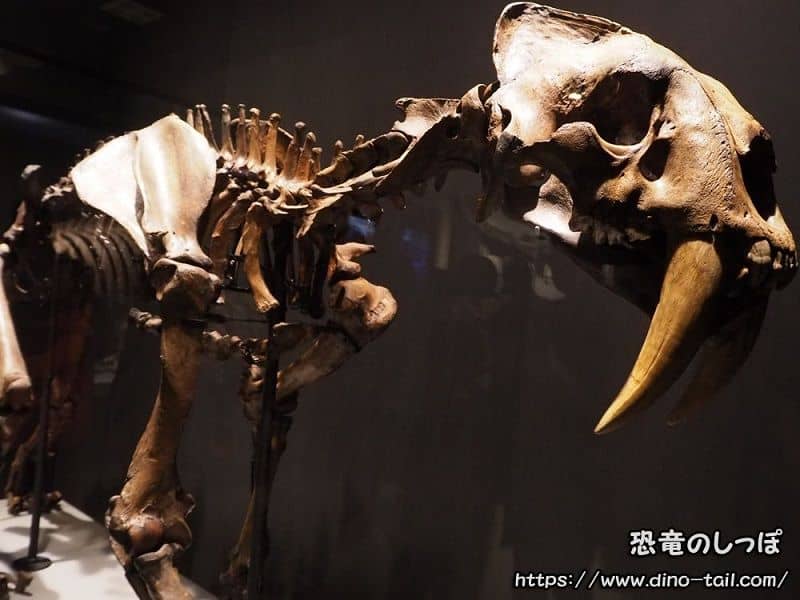
この長年の論争に大きな突破口を開いたのが、2023年8月に『Science』誌に発表されたラ・ブレア・タールピットの172点におよぶ高精度な放射性炭素年代測定と環境データの統合研究です。この調査により、南カリフォルニアのスミロドンを含む絶滅大型哺乳類7種は、寒冷化イベントであるヤンガードリアス期が始まるよりも前の、約1万3,070年前〜1万2,890年前の間にすでに地域的に完全絶滅していたことが判明し、寒冷化原因説が否定されました。
化石と植物花粉・木炭の記録から浮かび上がったのは、気候変動と人類の活動が連鎖した急激な環境崩壊のシナリオです。まず約2,000年間にわたって温暖化と深刻な乾燥化が進行して森林が徐々に後退し、木の葉や枝を主食とする地上性ナマケモノやラクダ類が数百年早く姿を消しました。続いて、乾燥して燃えやすくなっていた森林・疎林地帯において、当時急速に人口を増やしていた人類の火の使用が引き金となり、前例のない規模の「大規模火災」が増加しました。その結果、わずか300年間という極めて短い期間のうちに、樹木のある環境から乾燥に強い硬葉低木林(チャパラル)へと生態系が不可逆的に激変し、残されていたバイソンやウマ類、そしてそれらを捕食していたスミロドンとダイアウルフが同時に絶滅の道を歩んだのです。
絶滅直前の個体群を蝕んでいた遺伝性疾患
さらに、2023年から2026年にかけて行われた獣医古病理学調査により、絶滅に向かうラ・ブレアのスミロドン個体群が深刻な「近親交配(インブリーディング)」と遺伝的疾患に直面していた実態も浮き彫りになりました。
834本の大腿骨を精査した研究では、全体の6.0%(50例)という高い頻度で、現生のユキヒョウなどに見られる遺伝性の関節疾患(離断性骨軟骨炎)に酷似した膝関節の欠損が確認されました。さらに2026年の研究では、約1,000個体分の脊椎骨の中から、激しい神経痛や後ろあしの麻痺を引き起こす「脊髄神経腫瘍」の痕跡が3例特定されました。これは10万個体あたり353例(約0.35%)に相当し、人間における発生率(10万人あたり0.22〜0.38例)と比較しても異常な高頻度です。
生息地の分断と個体数の減少によって近親交配が進み、遺伝的な病気が蓄積していたスミロドンにとって、大規模火災による植生の激変と大型植物食獣の消失は致命的でした。小さな獲物も捕らえられる柔軟な食性を持った小型のコヨーテが新しい環境に適応して生き延びた一方で、大型植物食獣を茂みから待ち伏せして狩ることに極限まで特殊化していたスミロドンは、その見事な進化の特殊化ゆえに環境の激変を乗り越えることができず、絶滅へと至ったのです。