
イクチオサウルス(魚竜)とは
| 学名(属名) | Ichthyosaurus |
| 名前の意味 |
魚のようなトカゲ(爬虫類)
ichthys(魚)[ギリシャ語]-saurus(トカゲ)[ギリシャ語] |
| 分類 | 魚竜目・イクチオサウルス科 |
| 全長 | 約1.5m〜3.3m(種によって異なる。最大種は I. somersetensis) |
| 食性 | 肉食(魚類やイカなどの頭足類) |
| 生息時期 |
ジュラ紀前期(ヘッタンギアン期〜プリンスバッキアン期初期:約2億140万年前〜1億9,000万年前)
※広義の「魚竜類」全体としては三畳紀前期〜白亜紀後期(約2億5,000万年前〜9,000万年前) |
| 下分類・種名(有効6種) |
Ichthyosaurus communis(模式種 / 旧 I. intermedius を含む)
Ichthyosaurus breviceps Ichthyosaurus conybeari Ichthyosaurus anningae Ichthyosaurus larkini Ichthyosaurus somersetensis |
| 論文記載年 | 1821年(Henry De la Beche & William Conybeare) |
「イクチオサウルス」という呼称は、ジュラ紀前期のヨーロッパ周辺海域に生息していた特定の属(狭義のイクチオサウルス属:Ichthyosaurus)を指す場合と、三畳紀前期から白亜紀後期にかけて約1億6,000万年にわたり海洋生態系の頂点に君臨した「魚竜類(魚竜目)」全体を広義に指す場合の2通りがあります。本ページでは、近年の博物館標本の再調査によって分類や生態が劇的に塗り替えられている狭義のイクチオサウルス属を中心に、魚竜類全体が成し遂げた驚異的な水中進化の謎を解説します。
特徴:マグロ型の高速遊泳と深海を見通す巨大な眼

イクチオサウルスは、現代のイルカやマグロによく似た流線型の紡錘形(ぼうすいけい)の体型を持つ、水中生活に適応した海棲爬虫類です。イクチオサウルスを他の魚竜から見分ける大きな特徴は前脚のヒレ(前肢)にあり、指の骨が途中で二股に分岐(前方指骨分岐)することで、5〜6列の骨が緻密に並んだ幅広いパドル状のヒレを形成していました。
背びれや尾びれの上半分には骨がありません。そのため、イクチオサウルスが記載された19世紀当初は「背びれのない姿」で復元されていましたが、後にドイツのホルツマーデンなどから皮膚の輪郭が炭化して残った化石が発見され、背びれと垂直な三日月形の尾びれが存在したことが判明しました。
実はこの尾びれの存在は、軟組織の化石が見つかる前の1838年に、比較解剖学者のリチャード・オーウェンによって予見されていました。オーウェンは、多くのイクチオサウルス骨格で尾の先端近くの背骨(尾椎)が一様に下へ急角度で折れ曲がっていることに注目し、「生前に骨のない垂直な尾びれがあり、死後に重い尾びれが倒れることで同じ場所の骨が折れ曲がったのだ」と推論したのです。後のX線CTスキャンや骨学的研究により、この折れ曲がりは死後の破損ではなく、生前から尾の骨自体がくさび形に形成されて下向きに曲がり、垂直な尾びれの下半分を支える内部支柱として機能していたことがわかっています。
イクチオサウルスなどのジュラ紀以降の魚竜(トゥンノサウルス類)は、胴体をほとんど曲げずに固定し、尾びれの付け根(尾柄部)だけを左右に高速振動させて推進力を生み出す「マグロ型遊泳」を、脊椎動物の歴史上初めて獲得しました。2023年の比較骨格研究では、尾びれの付け根の手前で背骨が急激に短くなり、尾びれ内部に入ると骨のつぶれる方向が90度回転してヒレの剛性を高めるという構造が、現代のマグロ、ホホジロザメなどのネズミザメ類、クジラ・イルカ類と細部まで完全に一致していることが明らかになっています。

水深500mの暗闇を見通す「巨大な眼」と潜水病の代償
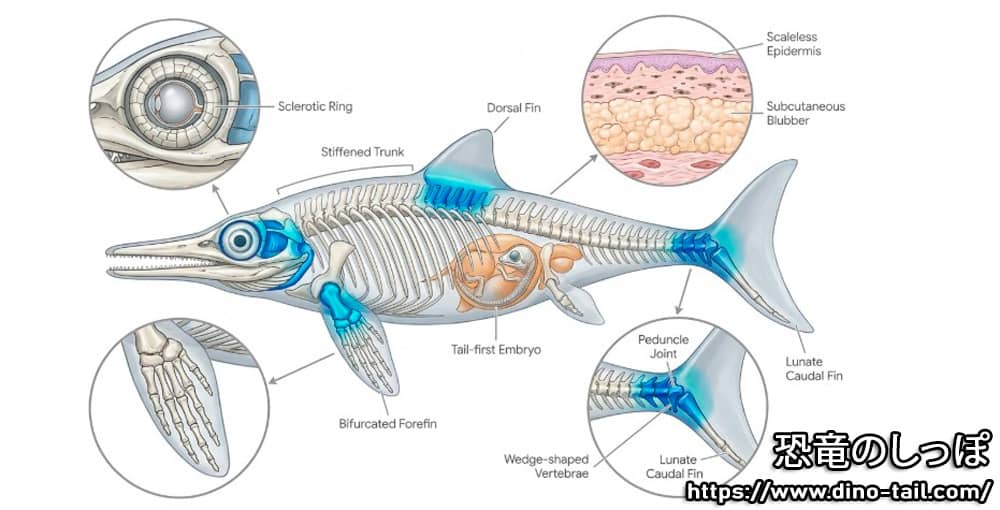
藻谷亮介らの研究チーム(1999年)が光学物理学の原理を用いて魚竜の眼の明るさ(集光能力を示す最小F値)を計算した結果、魚竜の眼は夜行性のネコに匹敵する極めて高い集光性能を持っていたことが判明しました。特にジュラ紀中〜後期のオフタルモサウルスなどは、水深500メートル以上のほぼ光が届かない深海(中深層)でも視覚を維持し、発光するイカなどの獲物を探知できました。また、2025年の視覚モデリング研究でも、ジュラ紀前期の魚竜が水深350メートルの薄明かりの中で、30メートル以上離れたわずか10センチメートルの獲物を視覚的に識別・追尾できたことが示されています。なお、イクチオサウルスと同時代に生息した大型魚竜テムノドントサウルスの強膜輪は直径25.3センチメートルに達し、現代のダイオウイカと並ぶ地球史上最大の眼球を持っていました。
深海潜水の代償「減圧症(潜水病)」:
イルカのような反響定位(エコーロケーション)を持たない代わりに、極限まで巨大化・高感度化したカメラ眼で深海の獲物を独占した魚竜でしたが、そこには過酷な代償もありました。後期三畳紀以降の進化した魚竜の上腕骨を調べると、その約16〜20%に「無腐性骨壊死(むふせいこつえし)」と呼ばれる病変が見つかっています。これは、高圧の深海で血液中に溶け込んだ窒素ガスが、水中での「急浮上」の際に気泡化して血管を詰まらせる減圧症(潜水病)の痕跡であり、彼らが深海へ潜っていたことを物語っています。
温血動物だった?:驚異の軟組織が明かす真実

かつて、イクチオサウルスをはじめとする魚竜は変温動物の「爬虫類」と考えられてきました。また19世紀には、胃の内容物として残っていたベレムナイト(古代のイカ類)の触腕フックの化石が、誤って「細かいウロコ」として報告されたこともありました。しかし2018年、ヨハン・リンドグレンらの国際研究チームが、ドイツ・ホルツマーデンのジュラ紀前期の地層(約1億8,000万年前)から発見された、イクチオサウルスに極めて近縁なステノプテリギウスの軟組織保存標本(MH 432)を電子顕微鏡や質量分析などで解析し、従来の常識を覆す事実を明らかにしました。
- ウロコのない滑らかな外皮と交差繊維のコルセット: 皮膚には爬虫類特有のウロコや骨板が欠如しており、現代のクジラ類やオサガメと同じような、水の摩擦抵抗を極限まで減らす滑らかなゴム状の皮膚を持っていました。また皮膚の内部には強靭な交差繊維構造が張り巡らされており、高速遊泳中に胴体が無駄にしなるのを防ぐ外骨格的コルセットとして機能していました。
- 皮下脂肪(Blubber:ブラバー)の発見と恒温性: 表皮と真皮の下層から、現代のクジラやイルカ、アザラシなどの海生哺乳類が持つものと全く同じ化学的・組織学的特徴を持つ、分厚い断熱性の「皮下脂肪層(ブラバー)」が発見されました。これは流線型の維持や浮力調整だけでなく、冷たい深海で体温を外部に逃さないための強力な断熱材であり、魚竜が自ら熱を生み出す「恒温動物(温血動物)」であったことを示す決定的な証拠です。
- 本物の体色(カウンターシェーディング): 皮膚に残された樹状の色素細胞(メラノフォア)を分析した結果、ユーメラニン色素の密度が背中側で極めて高く、お腹側では希薄な「カウンターシェーディング(逆陰影迷彩)」であったことが判明しました。暗い海底を背景に上から見られたときも、明るい海面を背景に下から見上げられたときも姿を隠せる巧みな迷彩であり、さらに色素細胞の形態から、紫外線防御や体温調節のために生きた状態で体色の濃淡を微調整できた可能性も示されています。
これらの発見により、魚竜類は単に外見がイルカやクジラに似ていただけではなく、皮膚の質感から皮下脂肪による体温維持、内臓の高い代謝に至るまで、現代の海洋哺乳類と驚くべきレベルの「収斂進化(しゅうれんしんか)」を遂げていたことが実証されました。
繁殖の秘密:陸上起源の「胎生」と逆子出産の進化
四肢を完全にパドル状のヒレへと変化させ、骨盤と背骨(仙椎)との結合を完全に失ったイクチオサウルスなどの魚竜は、ウミガメのように陸上に這い上がって産卵することが物理的に不可能でした。そのため、魚竜は生涯を水中で完結させ、母親のお腹の中で胎児を育てて赤ちゃんの形で産み落とす完全な「胎生(たいせい)」でした。実際に、イクチオサウルス属やステノプテリギウス属では、母体内に胎児の骨格を宿した化石や、出産の瞬間を閉じ込めたプレート化石が多数発見されています。
かつて古生物学界では、「魚竜の胎生は、彼らが海へ進出し、陸に上がれなくなった結果として水中で新たに進化した」という仮説が定説とされてきました。その根拠となっていたのが、イクチオサウルスなどの出産化石に見られる「尾からの出産(骨盤位分娩)」です。現代のクジラやイルカと同様に、空気呼吸をする海生動物が水中で頭から先に赤ちゃんを産むと、産道を出た直後に赤ちゃんが水中で反射的に息を吸って溺死する危険があります。尾から先に産み出し、最後に頭を外へ出すことで、産まれた直後に赤ちゃんが自力で海面へ泳ぎ上がって最初の呼吸ができるため、尾からの出産は水中生活への適応とみなされていたのです。
しかし2014年、藻谷亮介らの研究チームが中国・安徽省の前期三畳紀(約2億4,800万年前)の地層から発見・記載した、最も原始的な魚竜の仲間「チャオフサウルス(Chaohusaurus)」の出産化石が、この長年の定説を根底から覆しました。この化石には母体からまさに産まれようとしている胎児が保存されていましたが、驚くべきことに尾からではなく、陸上動物と同じように「頭から先(頭位分娩)」の姿勢で産道を出ていたのです。
胎生は「海に入る前」に陸上で進化していた!
頭から先に出産する様式は、陸上で出産する動物(陸生哺乳類や胎生トカゲ類など)に特有の特徴です。つまり、魚竜の祖先は海に入ってから胎生を獲得したのではなく、まだ陸上で生活していた段階ですでに「頭から産む胎生」を獲得しており、その性質を持ったまま海へと進出したのです(胎生の陸上起源)。初期のチャオフサウルスの段階ではまだ祖先的な「頭からの出産」が残っていたため難産や窒息のリスクが高く、その厳しい自然淘汰を経た結果、後のイクチオサウルスのような進化した魚竜において、二次的な適応として「尾からの出産」が進化・定着したことが明らかになりました。
化石収集家メアリー・アニングと「ゴミ箱分類群」の解消

大英自然史博物館に所蔵されています
(2017年東京・国立科学博物館で開催された「大英自然史博物館展」で展示されました)
1842年に「恐竜(Dinosauria)」という言葉が提唱される以前、19世紀初頭の科学界と人々の想像力を最も強く捉えていた絶滅巨大生物は魚竜でした。その発見の歴史を切り開いたのが、イギリス南部ドーセット州ライム・リージスの海岸(下部ジュラ系ブルー・ライアス層)で活躍した化石収集家メアリー・アニング(Mary Anning, 1799–1847)です。
1811年、メアリーの兄ジョセフ・アニング(当時15歳)が全長約1.2メートルに達する巨大な魚竜の頭骨を発見しました。そして翌1812年、当時11〜12歳だった妹のメアリーが潮の満ち引きと崖崩れの危険を冒して追跡発掘を行い、全長約4.5〜5.2メートルに及ぶ胴体骨格を掘り出しました。1814年に解剖学者エヴァラード・ホーム卿がこの標本を記載した論文は、魚竜に関する史上初の学術記載となりました。
かつてこの1811〜1812年の最初の標本はイクチオサウルス属として紹介されることが多くありましたが、現在の分類体系では、この歴史的標本(ロンドン自然史博物館所蔵:NHMUK PV R1158)はイクチオサウルス属ではなく、大型の別属である「テムノドントサウルス・プラティオドン(Temnodontosaurus platyodon)」の完模式標本(ホロタイプ)として同定されています。
一方、狭義のイクチオサウルス属(Ichthyosaurus)の学名は、1821年にヘンリー・デ・ラ・ビーチとウィリアム・コニベアが模式種イクチオサウルス・コムニス(Ichthyosaurus communis)を記載したことで定着しました(その前の1819年にホーム卿がアニング採掘の別標本に基づき「プロテオサウルス」の名を提唱していましたが、その標本は1941年のロンドン空襲で焼失しました。しかし2022年、米イェール大学とベルリンの博物館で当時の石膏レプリカが再発見され、焼失した標本が紛れもなくイクチオサウルス属であったことが証明されています)。1823年には、アニングが保存状態の極めて優れた Ichthyosaurus communis の骨格標本を発見したほか、約2億年前のベレムナイト化石の墨袋から色素を抽出して魚竜頭骨の精緻なスケッチを描くなど、古生物学の黎明期に計り知れない貢献を果たしました。
博物館に眠っていた新種の発見と有効6種の確立
19世紀を通じて、ジュラ紀前期の地層から見つかる魚竜化石は大半が無批判にイクチオサウルス属へと割り当てられ、1900年までに50種以上が乱立しました。特に模式種の Ichthyosaurus communis は、特徴の曖昧な標本が何でも投げ込まれる「ゴミ箱分類群」と化していました。2003年の整理で一度は有効種が3種(Ichthyosaurus communis, Ichthyosaurus breviceps, Ichthyosaurus conybeari)のみに絞られましたが、2010年代に入り、ディーン・ロマックスとジュディ・マサレらの研究チームが博物館に19世紀以来眠っていた数千点の標本を徹底的に再調査したことで、分類体系が再構築されました。
まず2015年には、イギリス・ドンカスター博物館に所蔵されていたドーセット産の標本が上腕骨や後肢の独特な構造から新種と判明し、メアリー・アニングに敬意を表してイクチオサウルス・アニンガエ(Ichthyosaurus anningae)と命名されました(2026年にはスペインからも本種の最大個体が報告され、ヨーロッパ広域に分布していたことが判明しています)。さらに2017年には、約200年間議論されてきた Ichthyosaurus intermedius が歯の成長変化や頭骨の一致から Ichthyosaurus communis の異名(シノニム)として統合される一方、新たにイクチオサウルス・ラーキニ(Ichthyosaurus larkini)と、属内最大種となるイクチオサウルス・サマセテンシス(Ichthyosaurus somersetensis)の2新種が記載され、現在は以下の有効6種が認められています。
| 種名(命名者・年) | 推定最大体長 | 主な特徴と生態的違い |
|---|---|---|
|
I. communis
(De la Beche & Conybeare, 1821) |
約2.0m | イクチオサウルス属の模式種。対称的な三角形の上顎骨と幅広い三放射状の涙骨を持つ。旧 I. intermedius を含む。 |
|
I. breviceps
(Owen, 1881) |
約1.6m | 吻部(鼻先)が短く、眼窩が極めて大きい。背骨の突起(神経棘)が高く脊椎の柔軟性に優れ、沿岸での高い旋回機動性を持っていた。 |
|
I. conybeari
(Lydekker, 1888) |
約1.5m前後 | 小型で細身の体型。プリンスバッキアン期初期まで存続が確認されている種のひとつ。 |
|
I. anningae
(Lomax & Massare, 2015) |
約1.5〜2.0m | メアリー・アニングに献名された中型種。上腕骨の独特な形態と後肢骨の接触様式で識別される。英国とスペインで確認。 |
|
I. larkini
(Lomax & Massare, 2017) |
約2.0〜2.5m | 外鼻孔(鼻の穴)の内部へ突き出す小さな三角形の骨突起を持ち、鼻孔を前後に部分的に区画していた。英国サマセット州で産出。 |
|
I. somersetensis
(Lomax & Massare, 2017) |
約3.0〜3.3m | イクチオサウルス属の最大種。鱗状骨の下向き突起や外鼻孔後端の骨質の弧状構造を備える。 |

出典: On the largest Ichthyosaurus: A new specimen of Ichthyosaurus somersetensis containing an embryo.
Acta Palaeontol. Pol. 62.
by Dean R. Lomax and Sven Sachs.
かつてイクチオサウルス属の最大体長は2.5メートルとされていましたが、2017年にロマックスとスヴェン・ザックスがドイツ・ハノーファーのニーダーザクセン州立博物館に展示されていたサマセット産のほぼ完全な骨格標本(NLMH 106234)を再調査した結果、お腹に胎児を宿した妊娠中のメスの Ichthyosaurus somersetensis であり、全長3.0〜3.3メートルに達する史上最大のイクチオサウルス属標本であることが判明しました。ジュラ紀前期のヨーロッパの海では、体格や吻の長さ、泳ぎの機動性が異なる複数の種が共存し、獲物や生息空間を巧みに分け合う「生態的ニッチ分割」を行っていたのです。
魚竜の起源と絶滅の謎:日本のウタツサウルスから白亜紀の二段階絶滅まで
陸上からの超高速進化と宮城県産「ウタツサウルス」
魚竜類全体の歴史(大進化)に目を向けると、その最古の化石記録は、古生代末のペルム紀末大量絶滅(約2億5,200万年前)からわずか200万年以内という前期三畳紀(約2億5,000万年前〜2億4,800万年前)に出現します。中国の「カルトリンクス」や「チャオフサウルス」といった小型の初期グループに続き、真の魚竜類(魚竜鰭類)の最古かつ最も原始的な姿を現代に伝えているのが、日本の宮城県本吉郡歌津町(現・南三陸町)の海岸から1970年に発見され、1978年に記載された「ウタツサウルス・ハタイイ(Utatsusaurus hataii)」です。
ウタツサウルス(推定全長2.5〜3.0メートル)は、陸生爬虫類からイルカ型の魚竜へ進化する途上の貴重な特徴(ミッシングリンク)を残しています。まだ背びれを持たず、進化した魚竜とは逆に「前脚よりも後ろ脚の方が大きい」という陸上動物の比率をとどめており、尾びれだけでなく体全体を左右にくねらせる「ウナギ型遊泳」を行っていました。しかし、骨の内部組織はすでに海綿状に軽量化されており、外洋(パンサラッサ海)を活発に泳ぎ回っていたことが分かっています。
さらに驚くべきことに、魚竜類は出現からわずか約300万年という極めて短い地質学的時間のうちに、頭骨だけで2メートルに達する超大型種「キンボスポンディルス・ヤンゴラム(Cymbospondylus youngorum)」へと進化し、地球史上初の「海の巨人」となりました。新生代のクジラ類が巨大化するまでに数千万年を要したのに比べ、初期の魚竜類がこれほど爆発的なスピードで巨大化できたのは、当時の海に高密度で繁栄していたアンモナイト類などの無脊椎動物を直接大量に捕食できる、短くエネルギー効率の高い食物網が存在していたためと考えられています。
なぜ恐竜より先に姿を消したのか? 白亜紀中期の「二段階絶滅」
ジュラ紀前期のプリンスバッキアン期(約1億9,000万年前頃)に海洋環境の変動によってイクチオサウルス属が衰退し、細長い吻を持つレプトネクテス科(2025年に記載されたキシフォドラコン Xiphodracon など)やステノプテリギウス、さらには巨大な眼を持つオフタルモサウルス科へと主役が交代した後も、魚竜類はジュラ紀末を越えて白亜紀前期まで高い多様性を保ち続けました。
ところが、これほど完璧な水中適応を成し遂げた魚竜類は、恐竜やモササウルス類、首長竜類を滅ぼした約6,600万年前の白亜紀末(K–Pg境界)大量絶滅を迎えることなく、それより約2,400万年も前の後期白亜紀セノマニアン期末(約9,000万年前)に地球上から完全に姿を消してしまいました。
2016年にヴァランタン・フィッシャーらの研究チームが発表した統計的解析により、その真の絶滅メカニズムが解明されました。白亜紀前期の後半(アプチアン期)以降、魚竜類は種数こそ維持していたものの、新しい体型や生態を生み出す「進化のスピード」が著しく低下し、形態のバリエーション(多様性)が失われる進化的硬直化に陥っていました。そこにセノマニアン期の「二段階の絶滅」が襲いかかります。
- 第1段階(セノマニアン期前期): 大型の獲物を襲う頂点捕食者タイプなど、生態的に多様だった魚竜グループがまず絶滅しました。その結果、殻を持たない小型で軟らかいイカ類(鞘形類)だけを専門に食べる、よく似た体型の高速遊泳型グループのみが生き残りました。
- 第2段階(セノマニアン期末): 単一の狭い生態的ニッチに追い込まれ、環境変化に対するクッション(多様性)を失っていた残存魚竜類に対し、セノマニアン期末の地球規模の環境激変(海洋の無酸素化、急激な温暖化、海水準変動)が直撃しました。進化速度が鈍化し新たな環境へ適応する力を失っていた魚竜類は、海洋生態系の劇的な再編(真骨魚類やネズミザメ類の爆発的増加、およびその後のモササウルス類の台頭)を乗り越えることができず、約1億6,000万年に及んだ進化の歴史に幕を下ろしたのです。