Datos básicos de Pteranodon
| Nombre científico (Género) | Pteranodon |
| Significado del nombre |
Ala sin dientes
pteron (ala) [griego] - an (sin) [griego] - odon (diente) [griego] |
| Clasificación | Pterosauria, Pterodactyloidea, Pteranodontidae |
| Envergadura |
Macho: Promedio aprox. 5,6m (máx. aprox. 7,25 - 7,6m)
Hembra: Promedio aprox. 3,8m |
| Peso | Aprox. 20 - 35kg (Machos grandes) |
| Dieta | Piscívoro (Comedor de peces) |
| Período | Cretácico Superior (Coniaciense tardío a Campaniense temprano, hace unos 87 a 82 millones de años) |
| Lugares de descubrimiento | América del Norte (Kansas, Alabama, Nebraska, Wyoming, Dakota del Sur, EE.UU., etc.) |
| Subclasificación / Nombre de la especie |
Pteranodon longiceps
(Especie tipo: una especie con una cresta larga que se extiende hacia atrás)
Pteranodon sternbergi (Una especie con una cresta erguida hacia arriba) * Hay teorías que separan a P. sternbergi en un género diferente Geosternbergia , o hacen independiente a Dawndraco , pero investigaciones recientes sugieren fuertemente que son especies o variaciones individuales dentro del género Pteranodon. |
| Año de descripción | 1876 |
| Publicación del espécimen tipo |
"Notice of a new sub-order of Pterosauria".
American Journal of Science. Series 3. por Marsh, O.C. 1876. |
Características de Pteranodon y Mecanismo de Vuelo
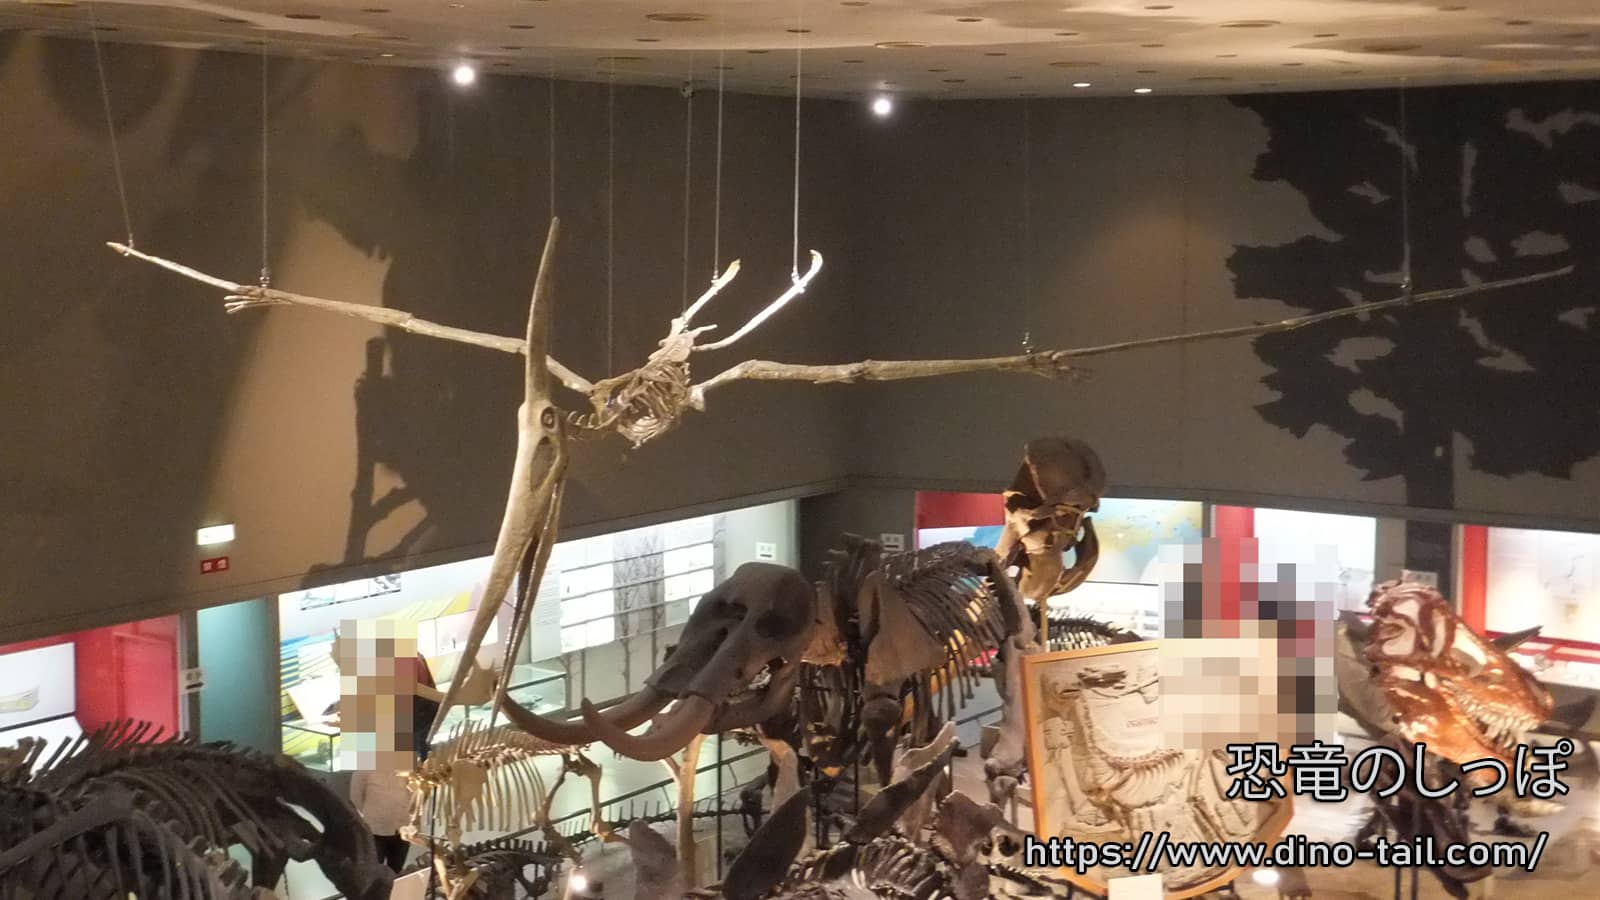
Pteranodon a veces se confunde con los dinosaurios, pero no es un dinosaurio, sino un reptil volador clasificado como "pterosaurio", adaptado al vuelo. Reinó como depredador ápice sobre la Vía Marítima Interior Occidental, un vasto mar interior que dividía el continente norteamericano en norte y sur durante el período Cretácico Superior. Es un género representativo de pterosaurios que aparece a menudo en enciclopedias y películas.
Los huesos de su tronco sufrieron un refuerzo exhaustivo (fusión ósea) para soportar la inmensa carga del vuelo y el despegue. Varias vértebras en la parte anterior de la espalda formaron un "notarium" fusionado en forma de barra, al cual se unían los huesos del hombro (escapulocoracoides) y el esternón, creando una estructura fuerte. Los huesos pélvicos se fusionaron de manera similar y eran robustos, y la cola se había degenerado para volverse extremadamente corta.
A pesar de tener un armazón esquelético tan resistente, las paredes de los huesos eran extremadamente delgadas. Una estructura hueca (neumaticidad esquelética) penetrada por sacos aéreos conectados al sistema respiratorio recorría todo el cuerpo, desde el cráneo hasta las puntas de las alas. Esto logró una reducción de peso mientras se mantenía la resistencia a la flexión de los huesos. Así, incluso un macho grande con una envergadura superior a los 7 m en realidad solo pesaba unos 20 a 35 kg.
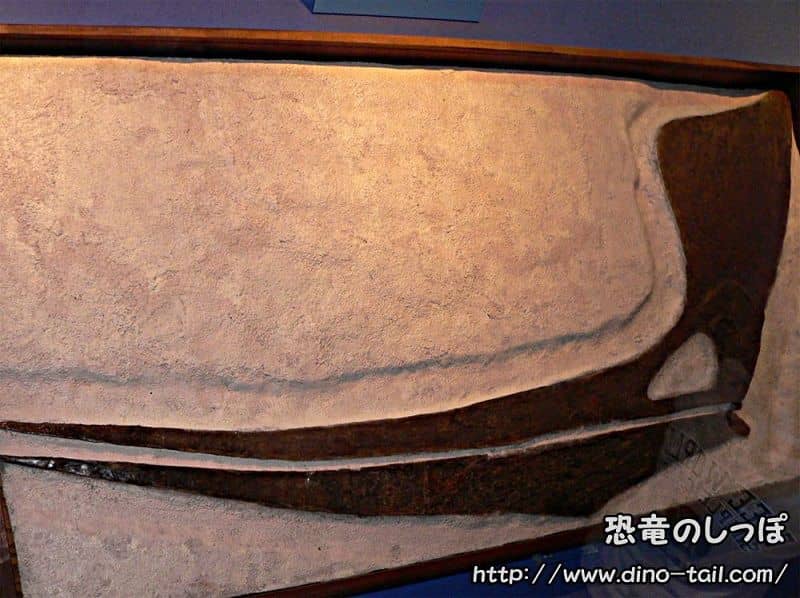
El cráneo tiene una mandíbula ósea larga, delgada y sin dientes, que forma un pico con una punta afilada y curvada hacia arriba. Las mandíbulas inferiores están fusionadas en la parte delantera para formar la mitad inferior del pico, mientras que se presume que una "bolsa gular" bien desarrollada para almacenar temporalmente los peces capturados se extendía entre los huesos izquierdo y derecho en la parte trasera, similar a los pelícanos modernos.
Además, la investigación sobre la cavidad cerebral (endocasto) utilizando tomografías computarizadas de rayos X de alta resolución reveló que una parte del cerebelo (flóculo), que integra el sentido del equilibrio de los canales semicirculares y la información visual durante el vuelo, estaba significativamente hipertrofiada. Esto proporcionó un excelente sistema de control que estabilizaba constantemente la postura de la cabeza y el campo de visión, incluso en medio de corrientes de aire cambiantes.
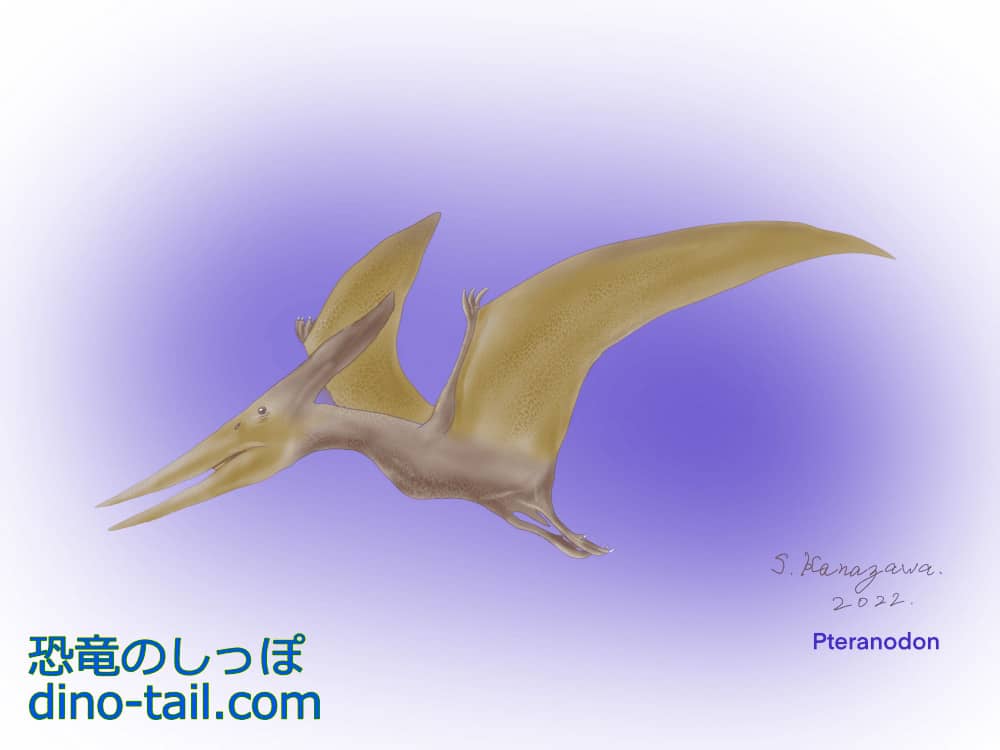
El ala de un pterosaurio se sostiene en su borde de ataque principal únicamente por un dedo anular extremadamente alargado (el cuarto dedo) de la extremidad anterior.
El pulgar, el índice y el dedo medio son pequeños, están equipados con garras y permanecen fuera de la membrana del ala, mientras que no hay dedo meñique. La membrana del ala no era piel simple; estaba reforzada por una disposición densa de fibras queratinosas altamente elásticas llamadas "actinofibrillas". Esta estructura soportaba la presión del aire durante el vuelo y facilitaba el plegado de las alas en el suelo.
Además, la muñeca poseía un hueso en forma de varilla exclusivo de los pterosaurios llamado "hueso pteroideo". Si bien alguna vez se pensó que este hueso apuntaba hacia adentro hacia el cuerpo, los análisis del rango de movimiento de las articulaciones del carpo y los experimentos en túneles de viento en la década de 2000 revelaron que apuntaba hacia adelante y hacia abajo durante el vuelo.
Al desplegar el hueso pteroideo hacia adelante y hacia abajo, el propatagio (la membrana del ala estirada entre la muñeca y el cuello) se arqueaba significativamente, funcionando como los "flaps de borde de ataque" (dispositivos hipersustentadores) de un avión. Esto aumentaba la sustentación, permitiendo un planeo a larga distancia con un ángulo de planeo poco profundo (solo 1° a 2°), comparable a los albatros y planeadores modernos, así como aterrizajes y despegues estables a bajas velocidades.
"Salto cuadrúpedo" desde el suelo o el agua
Por muy excelente que sea su capacidad de planeo, el mayor desafío para los animales voladores grandes es "despegar desde un estado estacionario". En los modelos de investigación de la década de 1970, se pensaba que Pteranodon tenía patas traseras delgadas y débiles, por lo que no podía caminar ni estar de pie en el suelo, y solo podía despegar saltando desde un acantilado empinado y rindiéndose al viento.
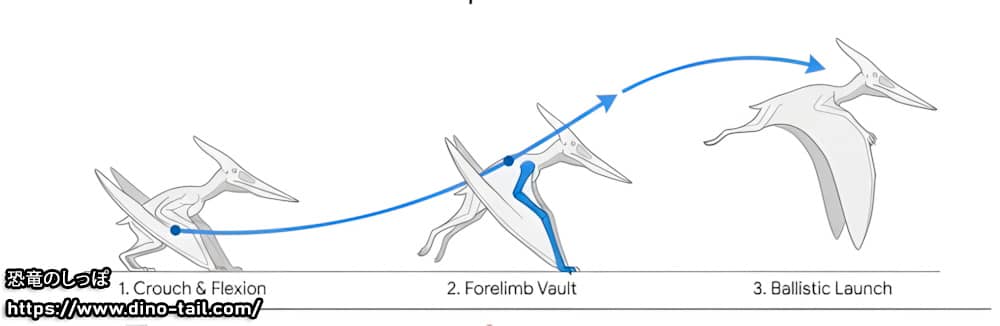
Este antiguo misterio fue resuelto por el modelo de "salto cuadrúpedo" establecido por el Dr. Michael Habib, el Dr. Mark Witton y otros entre 2008 y 2010.
Mientras que las aves modernas confían en la patada de sus patas traseras para el 80-90% de la fuerza necesaria en el despegue, las tomografías computarizadas que compararon la resistencia ósea mostraron que Pteranodon tenía una mayor resistencia a la flexión en los huesos de sus extremidades anteriores (húmero) en relación con los huesos de sus patas traseras (fémur).
Cuando estaba en el suelo, Pteranodon doblaba sus alas y se movía en forma cuadrúpeda. Para despegar hacia el cielo, primero flexionaba las patas traseras profundamente para hundir el cuerpo, movilizaba la fuerza de sus robustas extremidades anteriores (brazos) utilizadas para el vuelo y los músculos de su pecho para empujar el suelo con fuerza, y saltaba hacia adelante como un saltador con pértiga.
Los cálculos sugieren que en solo 0,32 segundos, podría saltar para trazar un arco con su centro de gravedad alcanzando una altura de 1,18 m. Esto proporcionaba una velocidad inicial mucho mayor que una carrera bípeda y aseguraba instantáneamente suficiente altura para que sus largas alas no golpearan el suelo, lo que le permitía hacer la transición al primer aleteo. Además, este mecanismo también era efectivo para despegar del agua; empujando fuertemente el agua con sus alas y patas traseras, podía despegar mar abierto por sí solo, salpicando agua.
Diferencias entre machos y hembras
Los fósiles de adultos maduros de Pteranodon se dividen claramente en dos grupos de diferentes tamaños y formas, lo que ahora se sabe que es la diferencia entre machos y hembras (dimorfismo sexual).
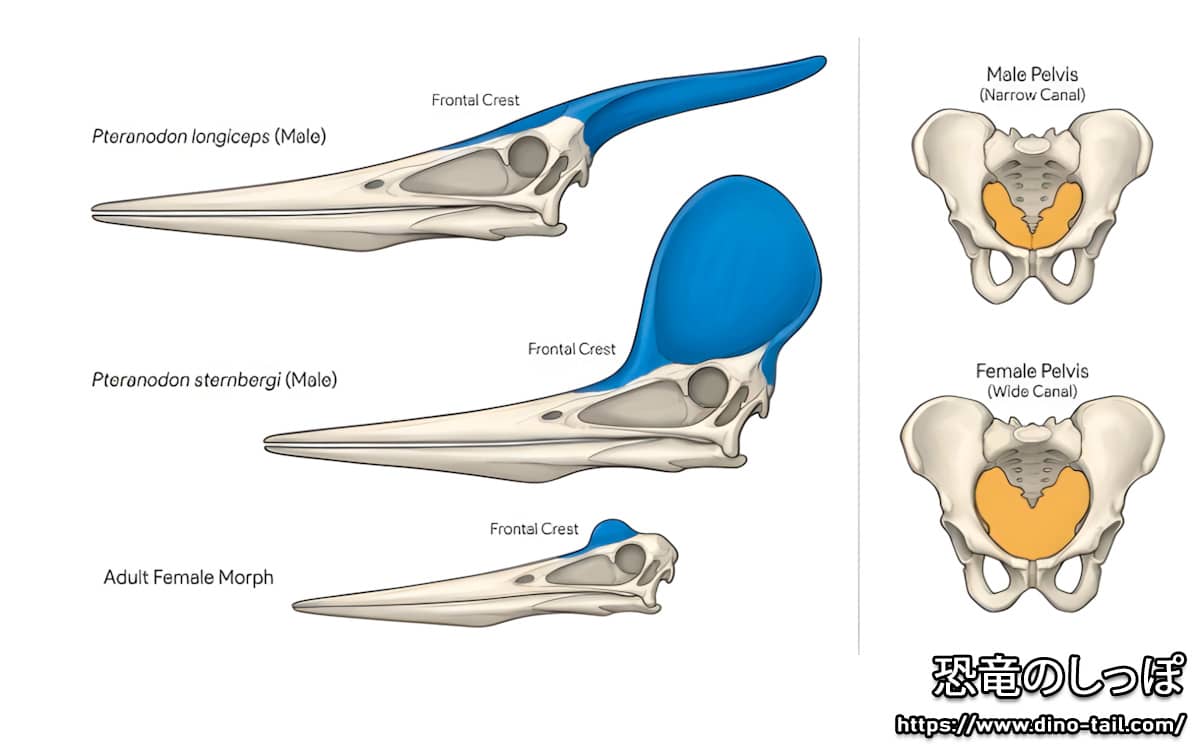
Arriba : Pteranodon longiceps macho
Medio : Pteranodon sternbergi macho
Abajo : Hembra
- Macho (Morfo grande): Tenían una complexión enorme con una envergadura promedio de 5,6 m, especímenes grandes (como USNM 50130) que alcanzaban 6,25-6,5 m, y el grupo de especímenes más grandes que alcanzaba 7,25-7,6 m, junto con una cresta muy grande y prominente en la parte superior de la cabeza. Por otro lado, el canal de parto (cavidad pélvica) de la pelvis era estrecho.
- Hembra (Morfo pequeño): Tenían una complexión pequeña con una envergadura promedio de 3,8 m, aproximadamente la mitad a dos tercios del tamaño de los machos, y la cresta se limitaba a una cresta muy pequeña y redondeada (el espécimen tipo YPM 1177 descrito en 1876 también es de este tipo femenino). Sin embargo, el canal de parto a través del cual pasan los huevos estaba muy abierto en relación con el tamaño de su cuerpo.
Con respecto al papel de la enorme cresta que sobresale de la cabeza del macho, en el pasado se propusieron funciones prácticas como "contrapeso para compensar el pico largo" o "ayuda al equilibrio durante el vuelo". Sin embargo, debido a que las hembras y los juveniles, que también volaban y buscaban alimento usando un pico largo, apenas tenían crestas grandes, y porque la cresta verticalmente imponente de la especie más antigua *P. sternbergi* actuaría negativamente sobre el equilibrio de la cabeza, la "teoría de la función de equilibrio de la cresta" ahora se rechaza.
Se concluye que el papel principal de la cresta era como un órgano de exhibición visual para cortejar a las hembras o parecer más grandes durante las disputas territoriales entre machos.
La crianza de Pteranodon era realizada únicamente por las hembras
Este dimorfismo sexual extremo sugiere un sistema de reproducción "poligínico" en el que los machos compiten por un harén de varias hembras.
Se infiere que Pteranodon construyó zonas de anidación a gran escala (colonias) en alta mar donde los depredadores terrestres no podían llegar, y los machos no participaron en la crianza de las crías después del apareamiento. Esto se debe a que, en un sistema poligínico, es imposible que un macho cuide a todos sus hijos.
Estudios recientes sobre histología ósea indican que los jóvenes Pteranodon tenían una baja madurez ósea para mantener un crecimiento rápido, lo que sugiere una fuerte tendencia a ser "altriciales", lo que significa que inicialmente no volaban mucho por su cuenta y requerían alimentación y protección de los padres. En otras palabras, toda la carga de continuar llevando pescado a los polluelos de rápido crecimiento en los nidos en alta mar recaía únicamente en las hembras. El hecho de que las hembras carecieran de crestas innecesarias y tuvieran cuerpos pequeños y livianos (con un promedio de 3,8 m) se considera una adaptación para maximizar la eficiencia energética del vuelo en la búsqueda de alimento en la zona pelágica y en los viajes de ida y vuelta al nido.
Pteranodon: Caza en el mar y enemigos naturales
El hecho de que los fósiles de Pteranodon se encuentren en sedimentos pelágicos a cientos de kilómetros de la costa de esa época indica que eran animales pelágicos que pasaban la mayor parte de su vida en el mar, al igual que los albatros modernos. Respecto a cómo pescaban, existió alguna vez la teoría del "skimming" (volar cerca de la superficie del agua e insertar el pico para pescar), pero exámenes detallados de la mandíbula y el cuello han concluido que era poco probable. En su lugar, se cree que utilizaban un método de flotar en la superficie y nadar para pescar, o de "zambullirse" como los piqueros modernos, utilizando su robusta estructura de cabeza, cuello y hombros para sumergirse en el agua con las alas plegadas hacia atrás.
Como evidencia directa de su dieta piscívora, se encontró una masa de espinas de peces pequeños semidigeridos (un bolo) cerca de la garganta de un fósil de mandíbula inferior (espécimen AMNH 5098) descubierto en Kansas, que se cree que fue regurgitado del estómago al morir.
Por otro lado, el comportamiento de bajar a la superficie del mar para alimentarse también significaba exponerse a la amenaza de los grandes depredadores que acechaban en el mar.
En la cuarta vértebra cervical (hueso del cuello) de un espécimen de Pteranodon con una envergadura de unos 5 m (LACM 50926) exhibido en el Museo de Historia Natural del Condado de Los Ángeles, se conserva incrustado un diente grande del gran tiburón del Cretácico Superior Cretoxyrhina (Cretoxyrhina mantelli). Se estima que este tiburón medía unos 2,5 m de largo (los individuos más grandes alcanzan de 5 a 5,5 m), y esto se considera evidencia del momento de la depredación donde el tiburón saltó del agua y mordió el cuello de un Pteranodon cerca de la superficie, o del tiburón hurgando en un cadáver flotando en el mar. Hay varios otros informes que muestran que Pteranodon era presa de carnívoros marinos de la época, como huesos de alas con marcas de mordeduras de otro tiburón (Squalicorax) y huesos de pterosaurio encontrados en el contenido del estómago de reptiles marinos como plesiosaurios.
Pteranodon no vio el impacto del meteorito
Pteranodon vivió durante el período Cretácico Superior (principalmente hace unos 87 a 82 millones de años). A veces se les representa en enciclopedias y películas viviendo al mismo tiempo que Tyrannosaurus o Triceratops, pero Tyrannosaurus y Triceratops vivieron al final del Cretácico (hace unos 68 a 66 millones de años). Los períodos de hábitat de los dos grupos están separados por más de 15 millones de años y no se superponen.
Esto significa que Pteranodon ya se había extinguido mucho antes de la extinción masiva causada por el impacto de un meteorito gigante a finales del Cretácico (hace unos 66 millones de años).
Historia del descubrimiento y evolución de las especies
Los fósiles de Pteranodon han sido descubiertos en gran número, particularmente en los estratos marinos que se extienden por Kansas, EE.UU. (el Miembro Tiza Smoky Hill de la Formación Niobrara y el Grupo Pierre Shale). La historia de la investigación se remonta a principios de la década de 1870, y cuando los paleontólogos Othniel Charles Marsh y Edward Drinker Cope describieron por primera vez fragmentos de huesos de alas, se pensó que eran parientes del pterosaurio Jurásico europeo Pterodactylus. Sin embargo, en 1876, Marsh examinó un espécimen que incluía un cráneo (holotipo: YPM 1177) recolectado por Samuel Williston. Confirmó características sin precedentes—"un largo pico sin dientes" y "una cresta distintiva en la cabeza"—y estableció el nuevo género Pteranodon (que significa "ala sin dientes", especie tipo: Pteranodon longiceps ).
Posteriormente, surgió confusión taxonómica, y se nombraron más de 11 especies debido a ligeras diferencias en los estratos donde se encontraron los fósiles o tamaños individuales. Sin embargo, en la década de 1990, el Dr. S. Christopher Bennett llevó a cabo un reexamen exhaustivo. Como resultado, se confirmó que no había diferencias que distinguieran especies en el esqueleto aparte del cráneo, y todas las especies nombradas tempranamente que no estaban acompañadas por cráneos se organizaron como nomina dubia (inválidas). Hoy en día, se reconocen dos especies (cronoespecies) que evolucionaron las formas de las crestas de acuerdo con la edad de los estratos.
- Pteranodon sternbergi: Una especie más antigua excavada de estratos más antiguos (tiza de Smoky Hill inferior). Se caracteriza por machos adultos con una cresta masiva que se eleva verticalmente con una proyección anterior.
- Pteranodon longiceps: Una especie más nueva excavada de estratos más recientes (tiza de Smoky Hill superior a Pierre Shale inferior). La cresta de los machos adultos evolucionó en una forma que se extiende hacia atrás en una hoja larga y delgada.
En 2010, el Dr. Alexander Kellner propuso dividir el género, convirtiendo a la especie *sternbergi* en un género independiente *Geosternbergia*, y estableciendo un nuevo género *Dawndraco* en base a diferencias como la inclinación del hocico. Sin embargo, reevaluaciones de la Dra. Elizabeth Martin-Silverstone y otros en 2017 y análisis filogenéticos en 2024 han demostrado que estas diferencias morfológicas se encuentran dentro del rango de etapas de crecimiento, variación individual y variación intraespecífica. Actualmente, la visión de volver a agruparlos en un solo género Pteranodon está ganando apoyo.
[Glosario] Cronoespecie
No se trata de múltiples especies que se ramificaron y coexistieron en el mismo marco de tiempo. En cambio, son especies que se distinguen cuando un solo linaje cambia gradualmente su apariencia (en el caso de Pteranodon, la forma de la cresta) a lo largo de millones de años, evolucionando linealmente (anagénesis) de una especie más antigua a una especie más nueva.
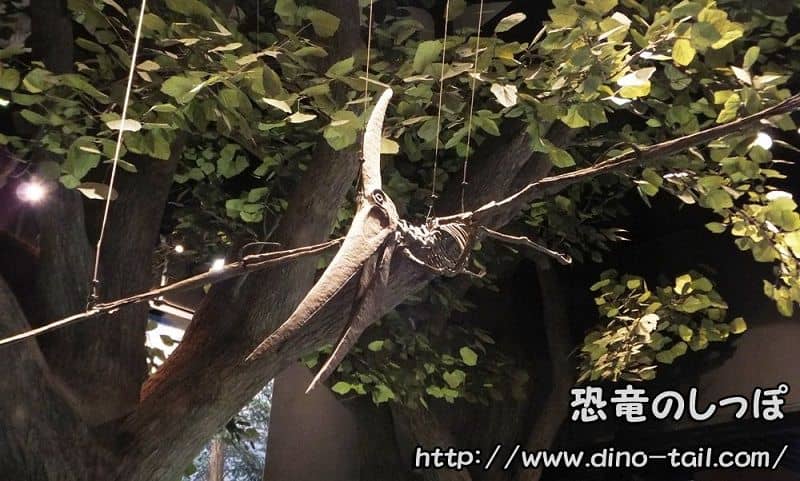
Galería de fósiles y sellos de Pteranodon