
竜盤目

伝統的な分類体系において、竜盤目はさらに以下の2つの主要な系統群(および三畳紀後期の初期肉食恐竜群であるヘレラサウルス類)に分けられます。
- ・獣脚類(じゅうきゃくるい / Theropoda)
- ・竜脚形類(りゅうきゃくけいるい / Sauropodomorpha)
獣脚類

獣脚類(Theropoda)は、三畳紀後期に出現した二足歩行性のグループであり、原始的な形態では大型の獲物を捕食する肉食性に適応していました。今まで発見された肉食恐竜は、初期のヘレラサウルス類などを除き、基本的にすべて獣脚類に属しています。(※逆に、獣脚類がすべて肉食恐竜であったわけではありません。なお、かつて「植物食へ進化した特異な堅尾類の獣脚類」と推定されていたジュラ紀後期のチレサウルスについては、近年の再解析により「鳥盤目の最も初期に分岐した系統」とみなす説も有力視されています。)
系統の基底部(原始的)にはエオドロマエウスやタワ、ダエモノサウルスなどが位置し、続いてコエロフィシスなどを含む新獣脚類、さらにジュラ紀から白亜紀にかけて繁栄したアヴェロストラ類(堅尾類)へと派生しました。また、約2億3000万年前の恐竜発生初期に生息していたヘレラサウルス、スタウリコサウルス、サンユアンサウルス、グナトヴォラクスなどの「ヘレラサウルス類」も、伝統的には竜盤目の基底部または基盤的な獣脚類として位置づけられてきました。
獣脚類の生物学的特徴は、他の恐竜系統と比較して骨格の進化速度が約4倍も速く、恐竜類の中で唯一「系統を通じた持続的な小型化」を遂げたグループを含むことです。特にドロマエオサウルス科や樹上生活に適応したスカンソリオプテリクス科を含むマニラプトル類では、手首に「半月状手根骨(はんげつじょうしゅこんこつ)」と呼ばれる滑車状の骨が進化し、現代の鳥類と同じように手首を前腕側へ折りたたむ動作が可能となりました。この骨格の軽量化・小型化と前肢の可動域拡大が、飛翔への適応を経て現生鳥類の誕生へと直結しています。
代表的な獣脚類には、最初に命名された恐竜であるメガロサウルスをはじめ、ティラノサウルス、アロサウルス、ドロマエオサウルス、ヴェロキラプトル、スピノサウルス、オヴィラプトル等がいます。
竜脚形類

竜脚形類(Sauropodomorpha)は、三畳紀後期のカルニアン期に出現し、ノリアン期にかけて急速な多様化を遂げた大型の植物食恐竜です。別名[かみなり竜]とも呼ばれ、体の大きさに比べて頭が小さく、体幹や四肢よりも長い首を持つのが特徴です。
ブリオレステスやエオラプトル、パンパドロマエウス、レイエサウルスといった最古級の初期竜脚形類(かつて「原竜脚類」と呼ばれましたが、現在では単一のグループではなく段階的な側系統群と認識されています)は、小型で華奢な二足歩行の動物食・雑食性動物として出発しました。しかし、バグアリアやパンティドラコ、エフラアシア、プラテオサウルス、マッソスポンディルス、リオハサウルスなどへと進化する過程で、吻部前端の歯の後退や大きな鋸歯(ギザギザ)を持つ葉状の歯冠(スプーン状・葉っぱ状の歯)など、効率的な植物食への適応と体の大型化が急速に進みました。
その後、ジュラ紀以降に繁栄した真の竜脚類(Sauropoda)は、巨大な体重を支えるために膝や肘の曲げ伸ばしの自由度を減らし、肩関節と股関節の真下に垂直に配置されたゾウのような重厚で中実な柱状の四肢(柱状肢)を進化させ、完全な四足歩行動物へと特化しました。代表的な竜脚形類には、ケティオサウルス、アパトサウルス、ブラキオサウルス、ディプロドクス、アルゼンチノサウルス、カマラサウルス等がいます。
鳥盤目

鳥盤目は、ジュラ紀前期のレソトサウルスやラキンタサウラ、ヘテロドントサウルス、フルイタデンス、アギリサウルスなどの小型二足歩行の初期系統から分岐し、さらに以下の3つの主要な系統群に分けられます。
- ・周飾頭類(しゅうしょくとうるい / Marginocephalia)
- ・装盾類(そうじゅんるい / Thyreophora)
- ・鳥脚類(ちょうきゃくるい / Ornithopoda)
周飾頭類

周飾頭類(Marginocephalia / 修飾頭類)は、鳥脚類と共通の祖先から分岐したグループ(両者を合わせて「角脚類」を形成します)で、頭蓋骨の後縁(頭頂骨および鱗状骨)が後方へ張り出して棚状またはフリル(エリ飾り)状の装飾構造を形成する特徴によって定義されます。頭部に角やフリルをもつ<角竜(Ceratopsia)>と、前頭骨と頭頂骨が肥厚してドーム状の頭蓋天井を形成した<石頭竜(堅頭竜類 / Pachycephalosauria)>が属しています。
角竜の特徴は、上顎先端に嘴骨(しこつ)が発達しオウムのようなくちばしを持っていることです。中国やモンゴルで初期の角竜が見つかっており、『角竜の発生・起源はアジアで、そこから他の地域に進出した』と考えられています。
アギリサウルスのような小さな前肢と長い尾を持つ二足歩行の祖先形態から派生し、プシッタコサウルスやアーケオケラトプスなど初期の角竜は二足歩行が可能でしたが、竜脚形類と同様、角竜も大型化・進化に伴って四足歩行へと移っていきました。
代表的な周飾頭類には、トリケラトプス、スティラコサウルス、プロトケラトプス、パキケファロサウルス、ステゴケラス等がいます。
装盾類

装盾類(Thyreophora)には、体表に整列した皮骨(骨板・スパイク・装甲板)を発達させた植物食恐竜が属しています。ジュラ紀前期のスケリドサウルスなどの基盤的な形態を経て、背中に2列の巨大な骨板や尾のスパイクを発達させた<剣竜類(Stegosauria)>と、体全体を重厚な装甲板で覆った<よろい竜(曲竜類 / Ankylosauria)>に分化しました。
この種類に属した恐竜は総じて、俊敏ではなかったようです。肉食恐竜に襲われた時に、尾の先のスパイク状のトゲやハンマーのような骨の塊を振り回して、「逃げる」以外の対抗手段をもっていました。
代表的な装盾類には、ステゴサウルス、オモサウルス、ケントロサウルス、ガストニア、アンキロサウルス、サイカニア等がいます。
鳥脚類

鳥脚類(Ornithopoda)は、上顎先端(前上顎骨)の歯を失うか縮小させ、発達したケラチン質の嘴と効率的な咀嚼を行う頬歯列を備えた植物食恐竜です。ゆっくり歩く時は四足歩行、走る時には二足歩行も可能という機能的な柔軟性を持っていた種も多く存在していました。
基盤的なハイヤやブリアノサウルス、ジュラ紀後期のカムプトサウルスやクムノリア、白亜紀前期のテノントサウルスやイグアノドン、背部に高い帆を持つオウラノサウルス類などを経て、白亜紀後期には無数の歯が密集したデンタルバッテリー構造を持つハドロサウルス科へと進化しました。(※なお、イグアノドンは上顎の片側に29本、下顎に幅広の歯を25本持っていましたが、ハドロサウルス類とは異なり生涯に一度しか歯の生え変わりを行わなかったとされています。)特に白亜紀中期以降に爆発的に拡散し、南極大陸を含むほぼ全ての地域で主要な植物食動物として生息していました。
代表的な鳥脚類には、イグアノドンやパラサウロロフス、サウロロフス、ランベオサウルス、マイアサウラ、コリトサウルス等がいます。
新しい分類への挑戦:鳥肢目(オルニトスケリダ)仮説と最新論争
2017年3月、世界的な科学誌"Nature"に、1887年以来130年間続いた恐竜の分類体系を根底から揺るがす新たな学説が掲載されました。
従来は、恐竜が<竜盤目>と<鳥盤目>に大きく枝分かれしたあとに、それぞれに「獣脚類」「竜脚形類」、「周飾頭類」「装盾類」「鳥脚類」が含まれていました。しかし、初期恐竜の進化を検証する従来のデータセットには、竜盤目の初期種が網羅される一方で、鳥盤目については単一のグループとして一括りにするか、ヘテロドントサウルスやピサノサウルスなどごく少数の種のみを代表として含めるにとどまっていたという方法論的な偏りがありました。
この偏りを解消するため、ケンブリッジ大学およびロンドン自然史博物館の古脊椎動物学者マシュー・バロン(Matthew G. Baron)、デイヴィッド・ノーマン、ポール・バレットらの研究チームは、三畳紀後期〜ジュラ紀前期の基盤的な恐竜を中心に、14種の鳥盤類を含む計74〜75種を対象として457項目におよぶ解剖学的形質を徹底的に解析しました。その結果、「竜脚形類」と「ヘレラサウルス類」が姉妹群となって再定義された<竜盤目(Saurischia)>を成し、「獣脚類」と「鳥盤目」が姉妹群として<鳥肢目(ちょうしもく / オルニトスケリダ:Ornithoscelida)>を形成するという新しい系統樹を提案しました。(※「オルニトスケリダ(鳥の肢の意)」という名称は、1870年にトーマス・ヘンリー・ハクスリーが提唱した歴史的分類名を復活させたものです。また、従来最古級の竜脚形類または獣脚類とされてきたエオラプトルは、鳥肢目の基底部付近に配置されました。)


バロンらの提案では、ティラノサウルスが属する獣脚類と、イグアノドンやトリケラトプスが属する鳥盤目が、従来考えられていたよりはるかに近縁であったことを主張しています。その根拠として、上顎の前上顎骨と上顎骨の歯列の間に明瞭な隙間(歯隙)があること、眼の前の窓(前眼窩窓)が上下に高いこと、上腕骨の骨幹の構造、そして脛骨・腓骨・足根骨が癒合して脛足根骨を形成する傾向や第1中足骨が足首の関節に達しないことなど、全身にわたる21の明確な共通特徴(共有派生形質)が特定されました。
さらにこの鳥肢目仮説は、恐竜学全体に2つの大きな波及効果をもたらしました。
1つ目は「恐竜類(Dinosauria)の定義そのものの再構築」です。従来、恐竜類は「イエスズメ(獣脚類の代表)とトリケラトプス(鳥盤目の代表)を含む最小の単系統群」と定義されていましたが、バロンらの系統樹ではこの2種はともに「鳥肢目」の内部に収まってしまうため、従来の定義をそのまま適用するとディプロドクスなどの竜脚形類やヘレラサウルス類が定義上「恐竜ではない」ことになってしまいます。そのためバロンらは、恐竜類の定義を「イエスズメ、トリケラトプス、およびディプロドクス・カーネギイを含む最小のグループ」へと拡張することを提案しました。
2つ目は「肉食性の独立獲得シナリオ」です。従来は「最初の恐竜は純粋な肉食動物であった」と考えられてきましたが、新分類では肉食のヘレラサウルス類(竜盤目)と肉食の獣脚類(鳥肢目)が別々の系統に分かれるため、初期の恐竜は小型二足歩行の雑食または小動物食であり、大型獲物を襲う高度な肉食性(超肉食性)や鋸歯状の歯は、ヘレラサウルス類と獣脚類の2つの系統でそれぞれ独立に(収斂進化として)獲得されたと結論づけられました。
| 系統群名(学名) | 伝統的所属 | 新分類(Baron et al. 2017)での所属 | 主な解剖学的・機能的特徴 | 代表的な属(Genus) |
|---|---|---|---|---|
| ヘレラサウルス類 (Herrerasauridae) |
竜盤目(基底部または基盤的獣脚類) | 竜盤目(再定義) (竜脚形類の姉妹群) |
三畳紀後期の二足歩行性肉食恐竜。鋸歯状の歯と捕食適応を持つが、獣脚類とは収斂進化の可能性がある | ヘレラサウルス、スタウリコサウルス、サンユアンサウルス、グナトヴォラクス |
| 竜脚形類 (Sauropodomorpha) |
竜盤目 | 竜盤目(再定義) (ヘレラサウルス類の姉妹群) |
葉状の歯冠、小さな頭部、長い頸部。初期は小型二足歩行(旧・原竜脚類)、後期は柱状の四肢を持つ巨大四足歩行(竜脚類) | ブリオレステス、エオラプトル、プラテオサウルス、マッソスポンディルス、ディプロドクス、ブラキオサウルス |
| 獣脚類 (Theropoda) |
竜盤目 | 鳥肢目(Ornithoscelida) (鳥盤目の姉妹群) |
中空の含気骨、二足歩行。基本的に肉食だが多様化。骨格変化速度が他群の約4倍速く、持続的小型化を経て現生鳥類へ進化 | タワ、コエロフィシス、メガロサウルス、アロサウルス、スピノサウルス、ティラノサウルス、ヴェロキラプトル |
| 装盾類 (Thyreophora) |
鳥盤目 | 鳥肢目(Ornithoscelida) (鳥盤目内の下位系統) |
体表に発達した皮骨(骨板、スパイク、装甲板)を持つ植物食恐竜。剣竜類と曲竜類(よろい竜)を含む | スケリドサウルス、ステゴサウルス、オモサウルス、ガストニア、アンキロサウルス |
| 鳥脚類 (Ornithopoda) |
鳥盤目 | 鳥肢目(Ornithoscelida) (鳥盤目内の下位系統) |
ケラチン質の嘴と発達した頬歯列を持つ植物食恐竜。四足歩行と二足歩行を併用可能。白亜紀中期以降に汎世界的に大繁栄 | カムプトサウルス、テノントサウルス、イグアノドン、サウロロフス、パラサウロロフス、マイアサウラ |
| 周飾頭類 (Marginocephalia) |
鳥盤目 | 鳥肢目(Ornithoscelida) (鳥盤目内の下位系統) |
頭頂骨・鱗状骨の後縁が棚状またはフリル状に突出。ドーム頭を持つ堅頭竜類(石頭竜)と角・フリルを持つ角竜類を含む | ステゴケラス、パキケファロサウルス、プシッタコサウルス、プロトケラトプス、トリケラトプス |
「三畳紀の鳥盤類危機」とミッシング・リンク(ピサノサウルスとチレサウルス)
鳥肢目仮説が提唱された背景には、三畳紀後期の地層から竜脚形類や初期獣脚類の化石が豊富に見つかる一方で、鳥盤目の確実な化石がほぼ皆無であるという「三畳紀の鳥盤類危機」と呼ばれる謎がありました。長年、三畳紀後期における唯一の鳥盤類とみなされてきたアルゼンチンの「ピサノサウルス」も、2017年の再記載によって恐竜ではなく非恐竜型の恐竜形類である「シレサウルス科」の特徴を持つことが判明し、確実な最古の鳥盤類はジュラ紀前期(ラキンタサウラやレソトサウルスなど)まで時代が下ることになったのです。
この空白を埋める存在として脚光を浴びたのが、チリのジュラ紀後期の地層から発見された植物食恐竜「チレサウルス」です。チレサウルスは葉状の歯、獣脚類的な強靭な前肢、そして後方へ回転した鳥盤類的な恥骨を併せ持つため、記載当初は「植物食へ進化した特異な獣脚類」と解釈されていました。しかし2017年8月、バロンとバレットが鳥肢目仮説のデータセットにチレサウルスを組み込んで解析した結果、チレサウルスは獣脚類ではなく「鳥盤目の最も基底部で分岐した最古参の系統」として位置づけられました。まだ鳥盤類特有の「前歯骨」を持たず、前肢や背骨に獣脚類の特徴を色濃く残すチレサウルスは、獣脚類的な祖先から植物食の鳥盤類へと至る進化の「ミッシング・リンク(移行形態)」を体現する標本として評価されています。
学術界での検証と「第3の仮説(シレサウルス科 : 初期鳥盤類説)」の登場
バロンらの発表から約8か月後の2017年11月、マックス・ランガーやスティーヴン・ブルサッテら世界各国の主要研究者9名からなる国際チームは、化石標本の直接観察に基づいてデータセットの約2,500箇所におよぶ形質スコアを見直して再解析を行い、再び従来の「竜盤目・鳥盤目の二分法」を復元しました。しかし重要なことに、ランガーらの再解析においても「伝統的モデル」は「鳥肢目モデル」よりわずか2進化ステップ短いだけであり、両者の間に統計的な有意差は全く認められませんでした。
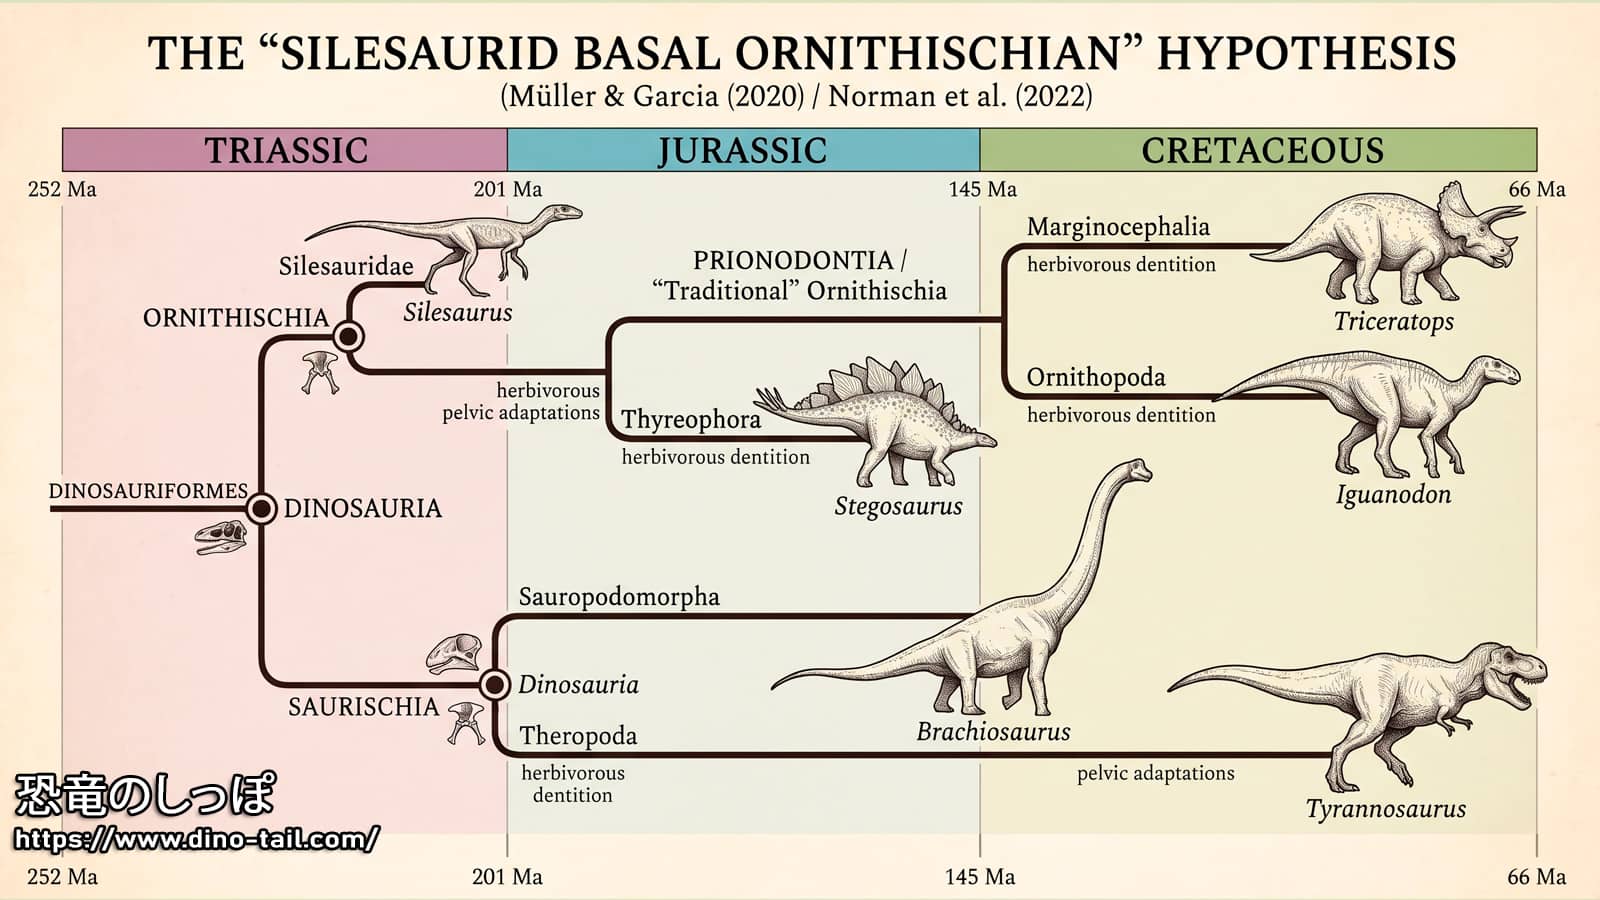
さらに2020年代に入ると、ミュラーとガルシア(2020)やノーマンら(2022)によって第3の有力な系統仮説が提唱されました。それが、従来は「恐竜類のすぐ外側に位置する姉妹群」とみなされてきた「シレサウルス科(シレサウルス、アシリサウルス、サキサウルス、ルイススクスなど)」を、鳥盤目の基部系統(初期段階の鳥盤類:パラプレデンタータ)として鳥盤目に編入する仮説です。シレサウルス科の多くは下顎の先端が無歯化して嘴(くちばし)状になり、植物食・雑食に適応した歯列を持つなど鳥盤類に酷似した特徴を備えています。三畳紀中期〜後期に繁栄していたシレサウルス科そのものが「初期段階の鳥盤類」であったと解釈すれば、鳥肢目を新設せず伝統的な「竜盤目・鳥盤目」の2大分類を維持したまま、「三畳紀に鳥盤類の化石が空白であった問題(幽霊系統)」を一挙に解消できるため、現在では「伝統的二分法」「鳥肢目仮説」「シレサウルス : 基盤的鳥盤類仮説」の3つの主要モデルが競い合う活発な議論が続けられています。
【用語解説:共有派生形質・幽霊系統(ゴースト・リネージ)・シレサウルス科】
・共有派生形質(きょうゆうはせいけいしつ):共通の祖先において新たに進化し、その子孫グループ全体に受け継がれた固有の新しい特徴のことです。生物同士の近縁関係(系統樹)を解き明かすための最も重要な証拠となります。
・幽霊系統(ゴースト・リネージ):系統樹の分岐タイミングから考えるとすでに地球上に存在していたはずなのに、その時代の地層から化石が全く見つかっていない空白期間のことです。
・シレサウルス科:三畳紀中期〜後期に生息していた恐竜形類のグループです。長年「恐竜ではないが恐竜に最も近い親戚」とされてきましたが、下顎先端の嘴化や植物食への適応が見られることから、近年では「伝統的な鳥盤類(プリオノドンティア)へと進化する途上の初期鳥盤類(パラプレデンタータ)」とみなす第3の仮説が有力視されています。
| 評価軸・特徴 | 1. 伝統的二分法モデル (Seeley 1887 / Langer et al. 2017) |
2. 鳥肢目(Ornithoscelida)モデル (Baron, Norman & Barrett 2017) |
3. シレサウルス基部鳥盤類モデル (Müller & Garcia 2020 / Norman et al. 2022) |
|---|---|---|---|
| 大分類の構成 | 竜盤目(獣脚類+竜脚形類+ヘレラサウルス類)と鳥盤目の2大系統 | 鳥肢目(獣脚類+鳥盤目)と再定義された竜盤目(竜脚形類+ヘレラサウルス類)の2大系統 | 竜盤目(獣脚類+竜脚形類)と拡大された鳥盤目(パラプレデンタータ)の2大系統 |
| 獣脚類の位置づけ | 竜盤目の一員(竜脚形類の姉妹群) | 鳥肢目の一員(鳥盤目の姉妹群) | 竜盤目の一員(竜脚形類の姉妹群) |
| ヘレラサウルス類の位置 | 竜盤目の基底部、または基盤的な獣脚類 | 再定義された竜盤目(竜脚形類の姉妹群)、または非恐竜型の恐竜形類 | 竜盤目の基底部、または恐竜類の基底部付近 |
| シレサウルス科の位置 | 恐竜類の外側(恐竜に最も近縁な非恐竜型の恐竜形類) | 恐竜類の外側(ピサノサウルスもシレサウルス科へ移動) | 鳥盤目の基部系統(伝統的鳥盤類へ至る段階的な初期系統) |
| 恐竜祖先における肉食性 | 最初の恐竜は肉食傾向が強く、竜盤目の共通祖先で捕食適応が確立 | 最初の恐竜は小型の雑食・小動物食であり、高度な肉食性はヘレラサウルス類と獣脚類で独立に獲得 | 最古級のシレサウルス類(肉食・雑食)から、鳥盤類系統と竜脚形類系統でそれぞれ段階的に植物食へ適応 |
| 三畳紀の鳥盤類空白問題 | ピサノサウルス除外により、三畳紀後期に長い幽霊系統(化石の空白)が生じる | 鳥盤目の分岐が三畳紀末〜ジュラ紀初頭近くであった可能性や、チレサウルスのような移行形態で説明 | 三畳紀中期〜後期に繁栄したシレサウルス科そのものが初期鳥盤類となるため、化石の空白問題が完全に解消 |